生物的时间之箭:缠结的层级结构、自指与跃迁一
生物的时间之箭:缠结的层级结构、自指与跃迁一
内容摘要
导语生命演化并不只是从一组既定的可能性中筛选答案。生命起源、真核细胞形成以及多细胞生命的涌现等重大演化跃迁事件还会改变演化过程中什么信息能够被编码、复制和实现。
导语
生命演化并不只是从一组既定的可能性中筛选答案。生命起源、真核细胞形成以及多细胞生命的涌现等重大演化跃迁事件还会改变演化过程中什么信息能够被编码、复制和实现。Prokopenko等人从计算与信息处理的视角,提出当宏观涌现模式被压缩并编码进微观组成部分的时候,生物系统便会形成具备自我建模能力的缠结的层级结构,但任何既有编码都无法穷尽环境中的可能性,由此产生的失配与张力,可能推动系统扩展自身的问题空间。这篇文章借助哥德尔—图灵—波斯特(Godel-Turing-Post)框架,将开放式演化理解为不断跳出系统的开放式元模拟过程,并据此提出生物时间箭头的计算理论猜想:生命的复杂化或许不是朝某个预设终点前进,而是在持续地重写自身可表达、可计算和可实现的边界。这是一套跨学科的理论框架,并非已经得到直接实验证实的普遍机制。
关键词:缠结层级(tangled hierarchy)、自指(self-reference)、不可判定性(undecidability)、开放式复杂性(open-ended complexity)、演化转变(evolutionary transition)
论文题目:Biological arrow of time: emergence of tangled information hierarchies and self-modelling dynamics
论文链接:https://iopscience.iop.org/article/10.1088/2632-072X/ad9cdc
发表时间:2025年1月23日
论文来源:Journal of Physics: Complexity
目录
-
引言
-
开放式生物复杂性与演化跃迁
2.1. 重大演化跃迁
2.2. 编码阈值与相空间扩展
2.3. 编码阈值处的创新共享
2.4. 劳动分工提高适应度并增加表现型空间的维数
2.5. 高层级智能体利用扩展的信息模式运作
2.6. 个体利益与群体利益之间的张力
2.7. 生态脚手架(Ecological scaffolding)
-
超越计算不可判定性:“突破”计算极限
3.1. 自指与对角化论证
3.2. 表达式与指称对象之间的差异
3.3. 不可计算性与预言机
3.4. 开放式计算元模拟
-
动力系统中的不可判定性与开放性
4.1. 物理动力系统中的不可判定性
4.2. 相空间的扩展
4.3. 生命游戏
-
新颖性生成的跨学科视角
5.1. 混沌、不可计算性与不可判定动力学
5.2. 计算新颖性的生成
5.3. 纠缠层级与怪圈
5.4. 生物信息的因果效力
5.5. 演化作为集体信息处理的动力学
5.6. 演化中的自我建模动力系统
5.7. 集体行动中的信息整合
5.8. 演化联结主义与生态脚手架
-
缠结的层级与自我建模
6.1. 两类缠结的层级
6.2. 不同类型缠结层级的实例
6.2.1. 蚂蚁觅食、共迹作用与最优路径形成
6.2.2. 基因型—表现型关系
6.2.3. 植物中的叶序模式形成
6.2.4. 自我建模集体动力学的演化
6.2.5. 没有自我建模的生态脚手架
6.2.6. 视觉悖论
6.3. 纠缠层级中的复制
-
缠结的层级中自我建模的涌现
7.1. 功能性自我描述的涌现
7.2. 利用了“指称对象”与“表达式”之间差异的协同适应度相互作用
-
作为开放式元模拟的生物时间箭头
-
讨论与结论
9.1. 扩展基因组的演化作用
9.2. 动态动力学稳定性(DKS)的提高
9.3. 功能信息的增加
9.4. 组装理论与“相邻可能”
9.5. 社会动力学与不可判定性
9.6. 总结
数据可用性声明
附录A 自指与不可判定性
A.1. 计算模型:图灵机
A.1.1. 停机问题与对角化
A.1.2. 自指的说谎者机器
A.2. 形式系统
A.2.1. 哥德尔不完备定理
A.2.2. 不可判定性
A.3. 动力系统:元胞自动机
A.3.1. 通用元胞自动机
A.3.2. 不可判定的元胞自动
附录B 不同框架之间的等价关系
ORCID标识符
目录
-
引言
-
开放式生物复杂性与演化跃迁
2.1. 重大演化跃迁
2.2. 编码阈值与相空间扩展
2.3. 编码阈值处的创新共享
2.4. 劳动分工提高适应度并增加表现型空间的维数
2.5. 高层级智能体利用扩展的信息模式运作
2.6. 个体利益与群体利益之间的张力
2.7. 生态脚手架(Ecological scaffolding)
-
超越计算不可判定性:“突破”计算极限
3.1. 自指与对角化论证
3.2. 表达式与指称对象之间的差异
3.3. 不可计算性与预言机
3.4. 开放式计算元模拟
-
动力系统中的不可判定性与开放性
4.1. 物理动力系统中的不可判定性
4.2. 相空间的扩展
4.3. 生命游戏
-
新颖性生成的跨学科视角
5.1. 混沌、不可计算性与不可判定动力学
5.2. 计算新颖性的生成
5.3. 纠缠层级与怪圈
5.4. 生物信息的因果效力
5.5. 演化作为集体信息处理的动力学
5.6. 演化中的自我建模动力系统
5.7. 集体行动中的信息整合
5.8. 演化联结主义与生态脚手架
-
缠结的层级与自我建模
6.1. 两类缠结的层级
6.2. 不同类型缠结层级的实例
6.2.1. 蚂蚁觅食、共迹作用与最优路径形成
6.2.2. 基因型—表现型关系
6.2.3. 植物中的叶序模式形成
6.2.4. 自我建模集体动力学的演化
6.2.5. 没有自我建模的生态脚手架
6.2.6. 视觉悖论
6.3. 纠缠层级中的复制
-
缠结的层级中自我建模的涌现
7.1. 功能性自我描述的涌现
7.2. 利用了“指称对象”与“表达式”之间差异的协同适应度相互作用
-
作为开放式元模拟的生物时间箭头
-
讨论与结论
9.1. 扩展基因组的演化作用
9.2. 动态动力学稳定性(DKS)的提高
9.3. 功能信息的增加
9.4. 组装理论与“相邻可能”
9.5. 社会动力学与不可判定性
9.6. 总结
数据可用性声明
附录A 自指与不可判定性
A.1. 计算模型:图灵机
A.1.1. 停机问题与对角化
A.1.2. 自指的说谎者机器
A.2. 形式系统
A.2.1. 哥德尔不完备定理
A.2.2. 不可判定性
A.3. 动力系统:元胞自动机
A.3.1. 通用元胞自动机
A.3.2. 不可判定的元胞自动
附录B 不同框架之间的等价关系
ORCID标识符
1. 引言
1. 引言
生物学长期面临的一项挑战,是建立能够解释生命复杂性为何似乎会随时间而增加的基本原理[2, 62]。在微观尺度上,复杂的分子相互作用网络和细胞过程会随时间演化并适应[72];在介观尺度上,有机体似乎不断产生新的形态、行为、学习策略和组织结构[73];在宏观尺度上,生态系统以支持物种间复杂相互作用的方式发展,从而产生新的生态位(niche)与生态关系,而这些又会推动进一步的演化改变[26]。
遗传、环境和生态因素的相互作用,产生了永不停息的生物创新和丰富多样性。总体而言,这种在多个尺度上表征演化、看似无界的复杂性增长,被称为开放式演化(open-ended evolution)[23]。Goldenfeld和Woese[39]提出了一个能够解释为什么理解开放式生物复杂性问题会格外困难的关键问题:
“这些规则本身需要演化,但如何演化?我们还需要一套额外规则,用来描述原有规则的演化。然而,这一更高层级的规则本身也需要演化。于是,我们最终得到一个无限层级。这不可避免地反映了这样一个事实:我们所寻找的动力学本质上具有自指性(self-referential)。”
针对这一挑战,研究者已经提出了若干方案[39, 42, 43, 52, 88, 96, 129, 131](见第9节)。然而,关于自指动力学(self-referential dynamics)如何在多个尺度上持续存在并不断延续,清晰而全面的解释仍然缺失:现有设想分散在不同学科中,缺少统一的形式框架。
本文通过探索生物复杂化(biological complexification)背后的计算与信息处理动力学来处理这一问题。我们的目标,是把开放式演化视为一种不断扩展自身问题空间的动态计算过程。为此,我们从计算理论视角解释重大演化跃迁事件(生命起源、真核细胞形成、多细胞性的涌现等)[102, 118],希望我们能提供一个统一而直观的视角,并促进学科间的交流。
我们的核心论证如下。我们把生物有机体视为动力系统,它们通过与环境的相互作用,可以在自身相空间(phase space)中产生规律性结构。在抽象意义上,这些涌现的规律性可被解释为(高层级的)信息模式,并可能通过向下因果(downward causation)作用影响(低层级的)有机体。高层级与低层级之间的这种因果循环称为缠结的层级结构[46]。我们猜想,缠结的层级结构能够孕育自我建模能力,从而提高有机体的复制效率。换言之,自我建模使有机体能够借助适当的编码,捕捉涌现的信息模式的压缩表征。然而,一旦采用这种编码,具备自我建模能力的缠结的层级结构就不可避免地在“现有配置中可编码的内容”与“当前环境中潜在的可实现的内容”之间产生张力(不一致性)。非正式地说,我们的主要论点是:一次演化跃迁通过扩展问题空间来化解这些张力,也就是产生一种新的方式,以编码扩展的信息模式。
我们首先从多种角度回顾重大演化跃迁事件(第2节)。随后,在哥德尔—图灵—波斯特递归论框架内,提出关于复杂性增长和开放式演化的计算理论论证。该框架将可扩展计算系统的构造形式化,例如α阶神谕图灵机,以及序数逻辑(ordinal logic)或递归生成逻辑(recursively generative logic)。我们主张,这一持续过程可被解释为一种开放式元模拟(open ended meta-simulation):它通过化解计算不一致性来构造新的问题空间(第3节)。文章背景的最后部分回顾了来自动力系统理论(第4节),以及复杂系统、系统生物学、人工生命和机器学习(第5节)的跨学科洞见。
在考察这些背景研究之后,我们提出区分两类缠结的信息层级:具备自我建模能力的层级与不具备该能力的层级(第6节)。借助这一区分,我们得以在“产生计算新颖性的开放式元模拟”与“在个体性演化转变过程中发现新相空间的持续演化过程”之间建立对应(第7节)。随后,我们阐明了自指和不可判定性的本质在形成生物时间箭头中的作用(第8节),并在最后把我们的论证与其他旨在解释生物复杂化和开放式演化的基本原理进行比较(第9节)。
2. 开放式生物复杂性与演化跃迁
本节讨论关于生物复杂化的不同观点。在随时间展开的演化动力学中,这一过程会被重大演化跃迁和“编码阈值”(coding threshold)所间断。通过回顾已有方法,我们着重指出这些观点共同面对的关键挑战与共有特征。
2.1. 重大演化跃迁
热力学第二定律指出,如果不耗费某种额外资源,就不可能把无序的热能完全转化为有序的功。更重要的是,第二定律意味着物理系统会自然衰变为结构性更弱的排列。置于这一背景下,地球生命系统蔚为壮观的演化就更为引人注目,必须用与这些限制性物理原理相容的方式加以解释。
对于生物演化进程,主要存在两种视角:一类强调演化通常是缓慢而连续地发生着,另一类则认为演化主要由突发转变跃迁(transition)而驱动[30, 93]。后一类观点主张,演化会在生物复杂性方面表现出重大跃迁[102]。一般而言,这些跃迁会显著改变有机体交换信息、相互合作与协调的方式,也会改变其生存和复制的方式。这些集合体可通过功能的专化(functional specialisation)而形成极为紧密的组织。功能专化会提高合作效率,却也会造成相互依赖[118]。它们由此开始作为“高阶”的单元而运作,并有效地驱动选择过程[90]。实际上,由于每个基因的复制都与高阶结构的生存联系在一起,选择会偏爱那些促进高阶结构存续的基因。反过来,这又使更深入的劳动分工与专化(division of labour and specialisation)成为可能。
如果尝试概括这些重大跃迁的共同点,可以发现,它们都会深刻改变“个体是什么”以及个体如何把自身性质保存到新世代。这通常以新型遗传系统的涌现为支撑,这种涌现涉及到存储、传递和处理信息的新方式,有时被称为新的“生命编码”(codes of life)[3, 59]。相关实例包括:可复制分子形成了细胞,即分子被区室化(compartmentalised)为一个“种群”。独立复制子(replicator,据推测为RNA)可能形成染色体,以减少复制过程中的信息损失。遗传密码和翻译机器的涌现(以DNA为基因、以蛋白质为酶)。原核生物演化为真核生物,后者具有被膜包裹的细胞核储存遗传信息。此后还包括多细胞性和真社会性的演化,以及语言和社会文化的演化[59, 102, 118]。
按照这种理解,自然演化会产生愈发精细的高阶有机体组织:从真核细胞到多细胞生物,乃至由新型信息处理方式支撑的蚁群和蜂群等集合体。然而,“生命编码”的数量多于重大跃迁的数量[59],而且仍有若干关键问题没有答案:是否存在驱动这些跃迁的计算原理?在一次跃迁过程中,需要权衡哪些计算上的得失?
专栏1:遗传信息与复制
基因转移
基因从一代传到下一代,即通过有性或无性繁殖而从亲代传给子代,称为垂直基因转移(vertical gene transfer,VGT)[13]。水平基因转移(horizontal gene transfer,HGT)则使部分遗传信息在同一世代亲缘关系较远的有机体之间横向移动[53]。
基因型(Genotype)与表现型(Phenotype)
基因型包含有机体DNA中携带的特定遗传信息,这些信息编码于核苷酸序列中。表现型则包括有机体可观察到的全部性状(物理、生化和行为性状)。遗传指令参与生物有机体的发育和运作:它们既参与其他组成部分的建造,也参与自身的复制。
扩展表现型
扩展表现型包括基因型超越有机体自身而对环境产生的全部影响。这包括有机体创造、并会影响其生存和繁殖的改造或结构,以及对生态系统中其他有机体的影响[26]。扩展表型包括:(i)行为创新,例如鸟类建造复杂巢穴的能力;(ii)与环境及其他有机体的相互作用,它们间接受基因组所编码性状的影响,例如昆虫产生的信息素会影响其交配、觅食和社会行为;(iii)有机体对环境的物理改造,例如河狸坝、蜘蛛网或蚂蚁的信息素轨迹,它们都源于遗传倾向与环境因素共同引导的行为。
基因表达
转录和翻译是基因表达的两个基本过程。DNA中编码的信息通过它们被用于产生功能性蛋白质,并进而构成有机体的表型。转录是把DNA中编码的蛋白质遗传信息复制为RNA的过程。翻译则是对制造蛋白质的指令进行解码的过程。
2.2. 编码阈值与相空间扩展
有观点认为,重大演化跃迁会跨越特定的“编码阈值”。这种跃变打开了一种新的演化相空间,使处理信息的方式出现了性质上的全新可能[59, 126]。例如,在讨论DNA的涌现时,Woese指出:
“在这一过程中的某个节点,必然发生过一次可称为‘编码阈值’的跃变(saltation):系统发展出以(共线性的)氨基酸序列为符号来表征核酸序列的能力。这一发展将生成一个极为庞大、全然独特的新演化相空间。”[126]
此外,Woese[126]提出,当细胞从一种由水平基因转移主导演化动力学的初始组织,转向由垂直遗传主导的新组织时,它可能跨越了另一次跃变。他把它称为“达尔文阈值”(Darwinian threshold)。这使演化从一种共同体过程(其中演化细胞没有维持稳定的谱系信息)转变为一个稳定的过程,让有机体谱系能够形成、保存自身遗物质成并共存[126](见第2.3节)。
类似地,当早期人类群体发展出语言(另一种“生命编码”[3, 59])时,它可能跨越了一个“语言阈值”。语言使知识能够以新的方式继承,并显著加快适应。Woese[126]进一步阐述了这一猜想,指出多细胞性或人类语言等高阶组织共有的特征之一,是其增强的交流能力,这种能力可以实现某种“远距离相互作用”。这一洞见强化了如下观点:高阶结构能够以协同方式进入扩展的问题求解空间,因此不能还原为信息处理子单元的简单聚合。
然而,研究重大跃迁会受到一种“先有鸡还是先有蛋”的因果困境阻碍。不同的错误阈值悖论(error threshold paradoxes,例如Eigen悖论[29])凸显了这一问题。原因在于,如果演化收益只能在更高层级实现,就往往难以解释更复杂结构最初是如何演化的。遗传学先驱Hugo de Vries在1904年对此作出了精辟表达:“自然选择或许能解释最适者的存活,却不能解释最适者的到来。”这个问题至今仍是一个活跃的研究主题。例如,Wagner[111]探讨了创新与适应能力如何推动演化成功,主张有机体产生新性状和新能力的能力对其长期生存与繁盛至关重要,并强调约束并非只是限制,也能够驱动创新。
另一个耐人寻味的猜想把质粒(plasmids)或病毒等遗传寄生物视为重大演化转变的主要催化剂。这些寄生物可能:(i)迫使宿主形成更复杂的结构,以抗击寄生威胁并在寄生物-宿主军备竞赛中获胜。同时(ii)通过寄生物促成的基因转移,为构建更高组织层级提供基本构件:
“只有提高组织复杂性,例如涌现多细胞聚集体,才能防止宿主-寄生物系统在寄生物压力下崩溃。”[57]
从抽象意义上看,这一假说表明,系统内部的不一致和张力可能为演化创新提供一种辩证推动力,迫使系统构造新的相空间。尽管如此,支撑开放式相空间扩展的一般计算理论原理仍未得到清晰表述。
2.3. 编码阈值处的创新共享
Vetsigian等人[110]考察了早期生命阶段,也就是垂直谱系继承出现之前,遗传密码的演化。他们主张,类细胞实体的早期演化动力学涉及以水平基因转移为中介的共同体继承。
该分析的一项关键洞见是,在这一共同体世界中涌现的遗传密码,不仅需要把氨基酸序列编码进基因组,还发挥着创新共享协议的作用。他们猜想,“早期生命不需要精细的容错水平”,因此,新兴的创新共享协议允许模糊翻译产生不精确副本,而密码子与氨基酸之间无需存在唯一映射。尽管如此,这一动力学仍产生了一种(近乎)普遍共有的信息编码机制,即通用遗传密码(universal genetic code):
“蛋白质编码区的水平基因转移,以及翻译组分的水平基因转移,保证了相似密码簇和兼容翻译机器簇的涌现。不同簇争夺生态位。由于共同体演化带来的益处,簇动力学唯一稳定的解就是普遍性。”[110]
该研究认为,通用遗传密码一旦涌现,遗传复杂性就可能呈指数增长。反过来,这又通过另一次(达尔文式)转变,使垂直的(个体)继承占据主导,并由此形成达尔文演化[110]。
2.4. 劳动分工提高适应度并增加表现型空间的维数
一般而言,生物适应度(fitness)包含两个组成部分,即繁殖力和生存力,二者之间的权衡塑造了多样的生活史。在克隆性多细胞生物或由遗传上相关的细胞组成的集落中,这类权衡会产生推动细胞专化的选择压力,因为群体适应度有可能高于各个细胞适应度的平均值[74]。例如,一个微管组织中心通常可以用于支持鞭毛运动,或者支持细胞分裂,却不能同时完成两者。因此,单细胞生物通常在时间上把繁殖阶段与运动阶段分开。在多细胞团藻(Volvox)中,这一权衡被认为促成了两组细胞在空间上的分化,即生殖系/体细胞分离[75]。动物演化中可能也出现过类似情形[55]。
专栏2:包容适应度(Inclusive fitness)
达尔文适应度
达尔文适应度是对繁殖成功程度的定量测量。更确切地说,它按照基因型分类,测量一个个体对下一代基因库的平均贡献。对给定环境而言,它取决于相对生存概率和繁殖率。
包容适应度
包容适应度与达尔文适合度相似,但它明确承认个体能够通过影响其他个体来改变自己对下一代的遗传贡献,因此有助于解释社会相互作用。它同时考虑这类相互作用对施加影响者和受影响者的作用,以及二者共享遗传信息的程度。
多细胞生物
多细胞生物由一个以上的细胞组成。大多数多细胞生物以克隆方式发育,即由单个细胞分裂而来。因此,这类生物的大多数细胞在遗传上相同(发育期间的突变,或生殖细胞中的遗传重组会造成例外)。较少见的情况是,多细胞生物通过聚集形成:单细胞可能响应环境线索而聚集为一个有机体。在这种情况下,参与聚集的细胞通常具有更高的遗传异质性。
除生存与繁殖这两个一般类别之外,还有许多与劳动分工有关的其他权衡。例如,在丝状蓝细菌中,固氮等对氧敏感的过程[33]与产氧光合作用在空间上分离,而细胞之间的代谢物交换使整体受益[132]。考虑到现存复杂生物拥有众多的不同细胞类型,劳动分工概念显然可以扩展到种类繁多的细胞功能。一般而言,多细胞生物内部的劳动分工可被视为表型空间维数的增加,因为空间分离使原本不相容的过程能够同时发生:
“从数学上看,聚集形态中劳动分工的演化优势,可以理解为表型空间维数增加时新的、更高适应度峰值的涌现。这些新适应度峰值并非聚集本身的直接结果,而是基于参与劳动分工的聚集个体之间的相互作用。”[49]
因此,鉴于互补的细胞状态甚至存在于单细胞集落群落中,劳动分工可能早在多细胞演化的最初阶段就已为细胞聚集体提供了优势[49, 104]。
2.5. 高层级智能体利用扩展的信息模式运作
由低层级组成部分之间的相互作用涌现出的高层级聚合组织,可能通过复杂反馈回路反过来影响其组成部分[45]。McMillen和Levin[73]研究了集体生物层级与个体生物层级之间的竞争。其中,“子单元的行为向上渗透至更高层级的适应过程”,而“更高组织层级则约束并促进其组成部分的行为”[73]。总体而言,对生物个体概念、群体选择问题以及集体层级与个体层级之间竞争性质的理解,应采取一种时间性的“历时”视角[78]。这种视角使我们能够考虑演化跃迁的中间阶段。这些阶段可能造成“不同选择层级之间的冲突,因为较小单元之间的选择可能破坏集合体的福祉”[78]。
采用这种思路后,McMillen和Levin[73]主张,多尺度组织的优势之一,是集体智能体能够创造新的问题空间,并改变高层级可用的能量景观,从而使低层级组成部分更高效地运作[73]。在这种解释中,能量函数代表一个优化问题:这一方法可追溯至Hopfield和Tank[48]对神经回路的研究。该开创性工作表明,相互连接的模拟神经元网络能够有效计算并求解困难的优化问题。最优解对应于网络能量函数(以神经元电压定义)的最低能量状态,即最稳定状态。正如Watson等人[116]所指出的:
“……在由许多低阶约束叠加构成的系统中,低能量(高效用)吸引子必然拥有较大的吸引域……因此,吸引子越优,就越频繁地被访问。于是它通过学习被进一步扩大,未来又更容易被访问,如此循环。”[116]
如果对由众多相互连接部分(例如基因调控网络、细胞等)组成的层级生物系统采用更宽泛的“集体智能”定义,就可以利用它与神经网络的类比,提出演化会以类似训练神经网络的方式改变这些连接(另见第2.6节和第5.6节)。当高阶系统通过改变能量景观而达到更低能量时,集合体就能够获得更高效用。
用信息处理术语来说,进入新问题空间意味着“有能力组成部分的集体智能”能够跨尺度传播信息,表现出整合的问题求解能力,从而使高层级智能体能够依据扩展的信息模式作出决策[73]。例如,蛙胚的基因表达受到其不同脑区之间空间电压差(即群体层级模式)的影响,而不是由单个细胞的绝对电压值决定[73, 79, 80]。其结果是,系统动力学能够访问更大的空间区域,并趋近那些效用更高(即能量更低)、吸引域也更大的吸引子。
2.6. 个体利益与群体利益之间的张力
有观点认为,高层级组织的涌现会在不同层级之间产生张力。正如Szathmáry和Smith[102]指出的:“在转变前能够独立复制的实体,在转变后只能作为更大整体的一部分进行复制。”Watson和Szathmáry[117]进一步发展了这一观点(另见[115]),指出在“演化-个体性研究(evo-ego)”中,“相关性会改变演化单元(使多个原先分离的单元在更高组织层级上成为一个新的单一单元)”。这一分析与McMillen和Levin[73]关于“集体智能”的研究密切相关,并再次表明高层级组织在性质上不同于低层级组织,而且会扩展可能性的相空间。
重要的是,Watson和Szathmáry[117]通过探讨“演化-个体性”关系,凸显了个体利益与群体利益之间的张力:“个体层级的选择会抵制那些实施群体层级选择的适应性结构的产生与维持。”他们强调,个体性转变实质上创造了新的演化单元,并可能通过演化出新的遗传机制或共同扩散繁殖机制,促进可演化性的演化[27]。关键在于,该方法识别出一种潜在的张力:
“……如果个体利益与群体利益一致,那么施加于群体层级的选择不会改变演化结果。如果个体利益与群体利益不一致,那么个体层级的选择就会抵制那些实施群体层级选择的适应性结构的产生与维持[78]。”[117]
Watson和Szathmáry[117]以及Watson等人[115]考察了这一张力,试图解释一个生物组织层级(例如单个细胞)上的演化,如何能够系统地产生在更高组织层级(例如多细胞生物)上以非平凡方式适应的繁殖结构,甚至是在“该层级的适应尚不存在之前”[117]。他们提出的演化联结主义方法将在第5.6-5.8节讨论。
2.7. 生态脚手架(Ecological scaffolding)
Black等人[9]为解释个体性跃迁提出了另一种方案。他们指出,这些跃迁与生物复杂性的涌现直接相关。为了分析并阐明有利于集体层级繁殖(例如多细胞生命)涌现的条件,他们提出了“生态脚手架”概念。具体而言,他们的模型表明:如果存在资源分布与扩散构成的生态结构,劳动分工就会使单个细胞能够“直接参与自然选择的演化过程,就仿佛它们是多细胞集合体的成员”[9]。
3. 超越计算不可判定性:“突破”计算极限
3. 超越计算不可判定性:“突破”计算极限
本节将把注意力转向计算理论方法。这些方法能够为分析复杂化的开放式过程提供形式化手段。后续各节将利用这一计算理论背景,描述开放式演化(见第2节讨论)中的新颖性生成。
一般而言,任何算法都无法求解或计算的问题或函数,被称为不可计算的。例如,停机问题是计算理论中的经典问题,它问的是:是否可能构造一种算法,使其能够针对任意程序和输入,判定该程序最终会停机(终止),还是会无限运行下去[108]。停机问题是不可判定的:不存在一种通用算法,能够对所有可能的程序—输入对求解停机问题。同样,Gödel证明,在任何足够强的形式系统中,都存在系统内部无法证明的真命题[38]。
3.1. 自指与对角化论证
自指表达式是指字面上指向自身的表达式,例如说谎者命题“这个句子是假的”中的短语“这个句子”。或者,它也可以通过自身的指称对象实现自指,即借助指称、命名或编码原表达式的其他表达式[12]。通过指称对象实现自指的一个著名例子是Gödel编号:关于自然数算术的命题本身都被唯一地赋予一个自然数。当有关自然数算术的命题被应用于其自身的Gödel数时,自指便由此产生[58]。
专栏3:什么是计算?
算法
计算被定义为执行一系列明确定义指令的过程。在给定输入状态时,该过程的执行可能满足某个终止条件,并产生相应的输出状态。
算法是一个由数学上严格定义的指令组成的有限序列,通常用于执行计算。
图灵机
计算模型(例如图灵机)是一种抽象模型,用来描述在给定输入的情况下,如何计算某个数学函数的输出。具体而言,图灵机模拟的是这样一种机制:它在一条无限长、由离散符号组成的输入纸带上运行,使用一个读写头读取或写入给定位置的符号、存储一个状态,并沿纸带向任一方向移动。图灵机包含根据读写头当前状态与所读符号而执行的转移规则进行转移,并根据被称为停机条件的条件而终止转移(见图1)。纸带的最终状态对应于计算的输出。
图灵机之所以成为通用计算机的代名词,是因为我们可以构造出通用图灵机(Universal Turing Machine,UTM):任意图灵机(任意算法)的构成配置与输入都能被编码为UTM的输入。UTM执行后所产生的输出,与原图灵机作用于原输入所得的输出相同(见图2)。
信息处理
区分“计算”与“信息处理”是有益的。后者是指系统对数据或信息进行操纵或变换,例如编码、压缩、存储、传输、解码、搜索、模式识别与检索等。尽管信息处理通常也把输入数据转换为输出,但一般来说,它不必产生有意义的输出,也可以在没有终止条件的情况下持续进行。因此,信息处理不同于计算。计算是一个具有明确定义的算法和终止(输出)状态的过程。(进一步讨论见[76,第12章]。)
图1:图灵机有限状态规格的一个示例。状态包括A、B、C和停机状态H。箭头标签(例如0/P,R)规定:读到某个纸带符号(例如符号0)时,将触发向另一状态的特定转移,随后执行相应动作,例如打印(P)并使纸带向右移动(R)[125]。
图2:通用图灵机(UTM)模拟图灵机M在输入I上的运行。程序P经编码后被转换为输入数据,并在纸带上通过适当选定的分隔符号×与输入I分开。
从历史上看,自指命题一直被用于借助所谓的对角化论证,证明与不可计算性有关的结果。对角化论证的一种典型设置包括表达式、指称对象⌜⌝,以及把表达式应用于指称对象⌜⌝时产生的性质。我们可以把它们直观表示为如下二维表:
不可计算性随后表现为:找到某些表达式与指称对象⌜⌝的组合,使得在不产生矛盾的情况下无法确定其性质。这类组合通常源于对形式的性质所作的构造。由于它们表示把一个表达式应用于其自身的指称对象,因此被视为自指的。
为说明对角化论证的工作方式,我们来考察Cantor定理。该结果指出,自然数的所有子集所构成的集合(单个子集例如{2, 5, 1})是不可数的。也就是说,任何自然数子集的列表(以自然数为索引)都不完整[15]。论证首先假定任意这样一个列表是完整的。对该列表,可按如下方式构造一个表达式—指称对象二维表格:表达式对应于各个子集,指称对象⌜⌝表示相应的索引(即),并将性质 定义为:若是的一个元素,则。否则。证明该列表不完整的第二步,是找到使无法确定的和。为此,利用对角线构造集合{k ∈ N | = 0},也就是说,当每个数被视为指称对象时,它不属于由它所指称的那个表达式。由于这是自然数的一个子集,它必然是我们列表中的某个表达式,记作。然而,任何计算的尝试都会导致矛盾:假定指称对象不属于,会得出确实属于的结论,反之亦然。因此,我们利用的不可计算性得出结论:最初的列表不可能是完整的。
另一种对角化论证可以用来证明实数是不可数的。Cantor使用一个表达式—指称对象二维表格,其各行是可枚举的无穷二进制数字序列。他证明,尽管列是可数的(对应于自然数),行实际上却是不可数的(代表实数)——也就是说,这个表格并非方阵。为此,Cantor运用对角化论证,构造了一个实数,它由二进制数字组成,并使每一位都与对角线上对应的互补(实质上就是把中的0与1互换)。根据定义,所构造的序列不同于任何可数序列,因为它至少有一位与后者不同。
3.2. 表达式与指称对象之间的差异
重要的是,对角化论证揭示并利用了表达式空间与指称对象空间之间的一种根本差异:一般而言,表达式比指称对象更多。换言之,不可能在这两个空间之间构造一一对应。例如,Cantor通过证明实数不可数,说明实数比自然数更多——尽管这两个集合都是无限集。表达式—指称对象之间的这一根本差异,是本文分析的关键部分。在停机问题的语境下,附录A.1.1也对此作了说明。
3.3. 不可计算性与预言机
Soare[99]曾略带讽刺地指出:“可计算性理论这一领域主要处理的是不可计算对象,而不是可计算对象。”关键在于,给定问题的不可计算性是相对于给定计算系统而言的。在某些情况下,考虑另一个以某种方式扩展原系统的系统,就可以克服这种不可计算性。例如,对图灵机而言不可判定的问题,可以通过增设一个称为“神谕”(Oracle)的组件而使得问题可以判定[109]。神谕是一个黑箱,它能够在一次操作中对相应判定问题的任意实例给出答案,如图3所示。给图灵机增加一个神谕,类似于给形式逻辑系统增加一条新的、独立的公理。由此,扩展后的系统能够证明原先无法证明的命题[22]。
图3: 图灵预言机[122]。
图4:α阶预言机的开放式序列。相应的图灵跳跃运算以开放式方式依次指派越来越困难的判定问题X, X′, X′′, …。
作为这种扩展的结果,神谕图灵机(oracle machine)——即连接到神谕的图灵机——可以模拟任何图灵机。在给定相同输入时,它能产生与被模拟图灵机相同的输出[99]。侯世达(Hofstadter)[46]曾非正式地把这种化解悖论的方式称为“跳出系统”(Jumping Out Of The System,JOOTSing)。然而,这种化解会在扩展后的系统(图灵机加神谕)内部产生新的不可判定问题,从而引出下一小节所述的开放式过程。
3.4. 开放式计算元模拟
一般而言,通过扩展计算系统的边界来化解不可判定性的思想,发展于递归论领域之中。特别是,哥德尔—图灵—波斯特的递归论框架提出了多种可扩展的构造序数逻辑或递归生成逻辑的方法[38, 83, 99, 107–109]。
图灵[109]提出了一种克服停机问题的方式:提供一种从系统边界之外获取答案的手段,也就是考虑为某个特定层级规定的α阶神谕预言机。一般来说,可以考虑一个阶数α不断增加的α阶神谕序列,其中每台机器(当α > 0时)都能解决较低层级不可判定的停机问题[82, 109],如图4所示。
各α阶神谕可以通过一种称为“图灵跳跃”(Turing jump)的运算联系起来。形式上,“图灵跳跃”是一种运算,它为每个判定问题指派一个依次更困难的判定问题,使得配有X的神谕的α阶神谕无法判定。关键在于,X的图灵跳跃会为配有X的神谕的α阶神谕之停机问题,生成一个(α+ 1)阶神谕。
通过加入与相应神谕交互所生成的特定“新颖性”,低阶系统的边界得以扩展。在描述这一持续迭代过程时,图灵[109]将其类比于哥德尔的序数逻辑[38]。序数逻辑与某个序数相联系,它通过递归地向先前逻辑序列中加入元素而构造出来:
“哥德尔(1931)的著名定理表明,每个逻辑系统在某种意义上都是不完备的。但与此同时,它也指出了如何从一个逻辑系统L获得一个更完备的系统L′……由此可以构造一个逻辑Lω,其中可证明定理的全集,就是借助逻辑L, L1, L2, …所能证明的全部定理。”[109]
波斯特(Post)[83]利用递归可枚举集进一步发展了这一观点。在证明每种递归生成的逻辑都可以扩展时,波斯特[83]提出了相对可计算性的概念:自然数集合的不可解度(degree of unsolvability),亦即图灵度(Turing degree),衡量该集合在算法意义上的不可解程度。因此,波斯特 [83] 提出了不可解度的层级,其中每一种“度”都表示一个集合不可解或不可计算的程度。层级中的每一层对应不同程度的计算复杂性,较高层集合比低层集合具有更强的不可计算性。
重要的是,每一个由α阶神谕(α > 0)构成的扩展系统 X(α),都能够模拟较低层的 X(α−1)系统。可以认为,高阶的 α 阶神谕是一种元模拟器,即对嵌套的低阶模拟进行模拟的模拟器(一直向下延伸到能够模拟任意图灵机的零阶神谕)。因此,我们提出:当高阶系统模拟低阶计算,并为低层不可判定问题提供答案时,它就是在对低阶系统进行元模拟。下文将把在哥德尔—图灵—波斯特递归论框架内,连续构造可扩展计算系统以及序数逻辑或递归生成逻辑的过程,称为开放式元模拟(open-ended meta-simulation)。
更多有关神谕、图灵跳、序数系统的讨论可以参考《图灵机“升仙记”》一文。
4. 动力系统中的不可判定性与开放性
4. 动力系统中的不可判定性与开放性
我们的第三个作为背景考察的主要领域是物理动力系统。物理系统中的不可判定动力学概念,是通过与计算不可判定性进行类比而定义的,因此,我们可以预期在不可预测动力学、扩展的相空间与可扩展计算系统之间发现逐渐清晰的对应关系。
4.1. 物理动力系统中的不可判定性
物理动力系统在本质上是非线性且时间连续的。Moore [77] 指出,至少具有三个自由度的物理动力系统可以与图灵机等价。即便初始条件完全已知,这类系统仍会表现出一种在性质上强于低维混沌的不可预测性,其长期动力学是不可判定的。Bennett [4] 对此作了如下区分:
“一个动力系统具有混沌性,是指它会以指数方式放大我们对初始条件的无知。一个动力系统具有不可判定性,则是指其长期行为的某些关键方面——例如一条轨迹是否会进入某个特定区域——虽然已经被决定,却即使在完全知道初始条件的情况下仍然无法预测。”
因此,不可判定性是一种比混沌更极端的不可预测性 [5]。其含义之一是:如果从动力系统的视角看待停机问题,那么停机问题的不可判定性就意味着,与通用图灵机相对应的动力学之长期行为无法预测,即使初始条件完全已知也是如此。
Moore 给出的一个相对简单的例子,是粒子在三维势场中的运动。不过,他认为三体问题(更一般地说是 体问题)呈现出更为现实的复杂动力学,适合用于检验这些思想。其特征包括缺乏标度行为、周期点谱不规则,以及吸引子状态不规则等。这些特征超出了非物理动力系统中通常用于表征混沌动力学的性质(例如 Lorenz 63 系统只是在数学上粗略近似真实天气系统的复杂动力学)。如图5所示,在经典牛顿引力三体问题中,即使每个物体的初始位置和速度均已知,也不可能预测其中某个轨道物体是否以及何时会摆脱引力束缚(即满足“停机条件”)。
由时空偏微分方程描述的物理动力系统(例如流体流动、传播波),如果拥有足够多的动力学变量,使其能在外部噪声存在时维持逻辑上不同的轨迹,就可能具备通用计算能力。Bennett [5] 认为,具有计算通用性的动力系统可用于定义物理复杂性:当一个自组织系统组织自身,并产生超出长期演化结果的新颖特征时,该物理复杂性就会增加。Wolpert [130] 推导了与物理计算有关的一系列具体不可能性结果。他的工作建立了乔姆斯基层级( Chomsky hierarchy)中有关通用图灵机及停机定理的对应结果,特别证明了某些类型的纠错编码不可能存在。
这些观察不仅为连接计算理论与动力系统关于复杂化过程的观点开辟了道路,也提示了开放式生物演化过程中的新颖性生成,同样可以从计算空间扩展的角度加以理解。第5节将更详细地讨论这些跨学科视角。
图5: n 体模拟,展示牛顿动力系统的不可预测性与不可判定性。此处的系统由 n = 3 颗质量不同的恒星组成(以不同颜色的轨迹表示),它们在引力作用下相互绕行。
4.2. 相空间的扩展
不同于非物理动力系统,物理动力系统受到物理定律约束,这似乎会限制相空间的扩展。然而,物理系统也可能呈现随机性(非确定性)动力学。只要这种随机性并非完全随机、而是具有某种底层结构或信息内容,它在服从物理定律(例如热力学定律)的同时,也能在确定性动力学之外引入额外自由度,即更高阶的复杂性。
一般而言,动力系统(包括物理和非物理系统)可能进入不同的动力学相空间状态,例如有序态、混沌态和混沌边缘态。不同状态具有不同的计算表征。混沌动力学与相空间探索范围的扩大相关,会持续生成信息,而且预测所需的信息量随时间增长。如上所述,混沌动力学并不必然在计算上不可判定。另一方面,混沌边缘动力学则被认为是最有利于信息处理和新颖性生成的 [60]。在物理系统中,混沌边缘与长程时空关联的自发涌现有关,因而能够有效扩展动力学相空间。近期研究(例如 [11, 44])显示,混沌边缘能够增强信息处理能力,但这种增强通常只体现在一般性质上,或只适用于相对复杂的计算任务,而不一定适用于某个特定任务。Prokopenko 等人 [86] 在元胞自动机的语境中研究了混沌边缘与不可判定动力学的联系。第4.3节将对此作简要介绍,第5.1节则作更详细的讨论。
4.3. 生命游戏
为了说明一个具体系统如何产生不可判定动力学,我们介绍康威生命游戏(Conway’s Game of Life),这是离散动力系统的著名例子 [36]。生命游戏是一种二维元胞自动机(cellular automaton, CA。见附录A.3),采用二元字符集,并在包含9个元胞的摩尔邻域(Moore neighbourhood)上定义局部更新规则:
-
死亡。任何活细胞若周围活邻居少于两个或多于三个,就会死亡。
-
存活。任何拥有两个或三个活邻居的活细胞,将存活到下一代。
-
诞生。任何恰有三个活邻居的死细胞,将变成活细胞。
生命游戏的动力学会产生相干的空间模式,包括在固定代数后重复自身的振荡子(例如图6),以及能够在网格中移动并复制自身结构的滑翔机。研究表明,元胞自动机能够执行分布式计算:振荡子表示信息存储(即记忆)[66],滑翔机体现信息传输(即通信)[63],滑翔机碰撞对应信息修改(即处理)[64],而这些计算过程形成相干的信息结构 [65]。
生命游戏的计算能力已经被证明等同于通用图灵机 [6],因此在某些条件下,生命游戏的动力学可能是不可判定的 [86]。换言之,对于生命游戏的所有初始构型,无法判定它们是否会到达某个预先规定的最终(终止)构型(见附录A.3)。
图6: 康威生命游戏中被称为“蟾蜍”(toad)的振荡多联骨牌图样的两种构型。
专栏4:时间之箭
存在若干概念上彼此有别的时间之箭。它们常常相互关联,共同构成我们对时间“不对称性”的理解,解释自然过程为何显得不可逆,以及我们为何将时间感知为从过去流向未来。
热力学时间之箭
热力学时间之箭由热力学第二定律定义。该定律指出,封闭系统的熵总是随时间增加,从而导致自然过程的不可逆性。
热力学时间之箭与演化
Blum [10] 讨论了“时间之箭(热力学第二定律)与有机演化之间的关系”,探讨演化中的不可逆性和方向性,并主张演化模式可能由热力学过程预先决定。另一项假说,即 Dollo 定律,认为生物体一旦在演化过程中失去一种复杂性状或结构,就不太可能以完全相同的形式重新获得它 [20]。换言之,Dollo 定律认为演化通常不可逆,尽管在相对较短的演化时间尺度上确实观察到过可逆演化 [19]。
宇宙学时间之箭
宇宙学时间之箭是指宇宙膨胀所对应的时间方向,其依据是宇宙随时间变得越来越大,而非收缩。
辐射时间之箭
辐射时间之箭将时间方向与辐射过程的传播方向对齐。例如,延迟电磁辐射以及光波和声波的发射,都会从源头向外扩展,并由高能态走向低能态。
因果时间之箭
因果时间之箭反映“原因先于结果”的原则:被感知的事件按照原因出现在结果之前的方式排列。
量子时间之箭
量子力学中定义的量子时间之箭,将时间方向与波函数坍缩联系起来。由于不确定性,量子系统中的时间方向可能是模糊的。但系统一经测量,便会从叠加态转变为确定态,由此定义一个时间方向。Seth Lloyd 提出了一种可能适用于其他时间之箭的深刻观点:时间之箭就是关联增长之箭 [67]。
5. 新颖性生成的跨学科视角
5. 新颖性生成的跨学科视角
本节综合三个研究领域中的若干背景研究,并探讨以下三者之间可能存在的联系:
(a)开放式生物复杂性,包括重大演化跃迁(第2节);
(b)开放式计算元模拟,包括连续解决低层不可判定问题(第3节);
(c)复杂动力系统,包括混沌吸引子和奇异吸引子(第4节)。在此过程中,我们将考察可演化性的演化如何与由个体和集体信息处理要素构成的层级结构之涌现相关,例如:(a)由既有生物体集合形成新的选择单位;(b)计算新颖性的生成;(c)在“混沌边缘”涌现能够自我复制的动力学行为。
5.1. 混沌、不可计算性与不可判定动力学
Casti 提出,混沌动力系统的存在与哥德尔不完备定理之间存在联系 [16, p. 317;17, p. 148]。Casti 认为:
“……一个形式系统的定理、一台通用图灵机(UTM)的输出,以及一个动力过程(例如一维元胞自动机)的吸引子集合,三者完全等价。给定其中任何一个,都可以忠实地转换成另外两个。”[16, p. 317]
基于这一对应关系,Casti 研究了能够计算数或程序之柯尔莫哥洛夫复杂度(Kolmogorov complexity)的动力系统。柯尔莫哥洛夫复杂度是能够计算这些对象的最短程序长度。随后,Casti 将 Chaitin 关于柯尔莫哥洛夫复杂度的(不完备性)定理 [18] 应用于此,证明这类具有通用计算能力的动力系统存在从任何初始状态都无法到达的奇异吸引子。Casti 认为,这与哥德尔第一不完备定理等价。类似地,Adams 等人 [1] 指出,简单的一维元胞自动机拥有许多状态,无论反复应用完整的256条演化规则中的哪一条,都无法从任何初始状态到达这些状态。然而,如果演化规则本身随时间演化,这些状态就可能变得可达。
Prokopenko 等人 [86] 识别出(i)形式系统、(ii)算法和(iii)动力系统之间的若干基本关系。比较分析发现,在这三种计算框架中,生成不可判定动力学涉及三个共同因素:(i)程序—数据二重性(例如把图灵机编码为输入数据);(ii)能够使用无限的计算介质(例如图灵机使用的无限纸带);(iii)能够实现否定(例如能够翻转接受状态与拒绝状态)。
Prokopenko 等人 [86] 在广义语境下考察“不可判定动力学”,并将不可计算性的概念推广到多种计算框架。例如,在形式系统中,动力过程可以等同于一个证明:它是从公理出发、依照推理规则推导出的合式公式序列。相应地,适用于形式系统的哥德尔不完备定理确立了公理理论中可证明性的界限,利用了某些形式语句既不能被证明也不能被证伪这一事实(例如体现说谎者悖论的著名哥德尔句子)。
类似地,对于图灵机而言,动态计算过程由从某个输入开始的机器状态序列和纸带模式构成。停机问题是计算不可判定性的典型例子,它表明:对于所有程序—输入组合,无法确定计算最终会进入预定的停机状态,还是会永远运行下去。
最后,可以考察某一动力系统(例如元胞自动机)中从初始状态出发的构型演化,即一条动力学轨迹。在适当定义终止条件后(例如检验不动点或极限环),人们可以尝试判断该轨迹究竟会到达预定吸引子,还是会沿着“混沌边缘”持续展开,即 Wolfram 的第四类元胞自动机 [128]。后一种情形可以等同于不可判定动力学。另见第4.1节。
综上,形式系统(例如逻辑系统)、计算模型(例如图灵机)和动力系统(例如元胞自动机)彼此具有深刻联系:这些框架都可以产生通用计算,并生成不可判定动力学。这种不可判定性通过三个因素表现出来:自指、无限计算与否定 [86]。
5.2. 计算新颖性的生成
不可判定动力学的自指基础与新颖性生成有着根本联系 [86]。正如 Markose [69, 70] 所指出,数字智能体之所以能够产生计算新颖性并“跳出框架思考”,其基础在于它们能够编码带有否定的自指语句(例如说谎者悖论或哥德尔句)。关键在于,这种能力使智能体能够跳出已知的可列举集合(例如行动、技术或表型),并产生新的结构化对象。如第3.2节所述,这是表达式空间与指称对象空间之间根本差异的结果,而各种对角化论证正是利用了这种差异。
Svahn 和 Prokopenko [101] 探讨了对形式系统施加计算极限的不可判定性,如何在生物 RNA 自动机中表现出来。他们特别考察了与图灵机等价的 RNA 自动机,即既能模拟通用图灵机、也能被通用图灵机模拟的自动机。重要的是,他们认为,这些 RNA 自动机的演化空间可以通过一个连续过程扩展。这一过程类似于借助神谕图灵机层级式解决计算不可判定性,并进一步对应于一系列图灵序数逻辑和 Post 可扩展递归生成逻辑。该方案假设,在生物 RNA 自动机与环境相互作用的语境中,解决其可能出现的不可判定构型,可以构成一种新颖性生成机制 [101]。
因此,计算新颖性可以被视为问题空间的扩展,它由利用对角化论证开发表达式—指称对象差异的智能体所创造。换言之,能够获得元层计算结果的自我建模智能体可以生成新颖性,例如通过高阶预言机和可扩展逻辑进行元模拟(见第3.3、3.4节),或从外部环境中获得相应信息。
5.3. 纠缠层级与怪圈
侯世达 在其开创性著作中 [46],通过研究以自相似方式出现在不同层级或尺度上的递归结构,探讨了自指是如何促成系统中涌现复杂性的。重要的是,侯世达 讨论了哥德尔不完备定理:任何具有足够表达能力、能够描述基本算术的形式数学系统,都必然包含一些真实却无法在该系统内部证明的陈述。
侯世达 [46] 提出并深入讨论了缠结的层次结构这一概念(见专栏5),指出它广泛涌现于从语言、认知到人工智能和意识的各种现象中。自指在这一过程中发挥关键作用,因为它允许层级的不同层次之间形成反馈环与递归相互作用。侯世达 尤其主张,纠缠层级是人类认知的基础,而人类认知高度依赖类比思维与自指环。“怪圈”(strange loop)概念概括了这一思想:思维模式可以回绕至自身,并由此生成新的理解层次。
5.4. 生物信息的因果效力
Walker 和 Davies [113] 认为,层级并非只是容纳某种数量的信息,而是提供一种描述其组织方式的特定信息处理安排,例如反馈环、主动信息和整合信息。这种安排赋予层级中的高层更多功能性“力量”,即因果效力。换言之,信息层级之所以可能涌现(或自组织),是因为它们能够体现信息的因果效力:
“……生物信息还具有一种额外性质,可以粗略地称为‘功能性’或‘情境性’,使其区别于仅由 Shannon 信息量表征的一组比特。……DNA(在很大程度上)是一个被动储存库,储存的数据被转录成 RNA,其中一部分(但绝非全部)进一步被翻译成蛋白质。……在生物学上重要的是所表达 RNA 和蛋白质的功能,而不是比特本身。”[113]
Walker 和 Davies [113] 进一步指出,生物信息(即功能性)会主动参与信息处理,例如控制与反馈。因此,功能性具有动态性,取决于生物体的当前状态与历史。这一“生命的算法起源”视角认为,要划分非生命阶段和生命阶段,就必须分析动态信息并识别因果架构:
“……生命的涌现可能对应一种物理转变,该转变与因果结构的改变有关。在这种新结构中,信息对承载它的物质获得了直接且依赖情境的因果效力。”[113]
继 Davies [25] 之后,该研究把表型—基因型关系解释为硬件—软件关系:生物系统中的化学过程相当于硬件,而信息(例如遗传信息和表观遗传信息)相当于软件。因此,“传统上提出的鸡生蛋还是蛋生鸡问题,实质上变成了模拟硬件还是数字硬件先出现的争论”[113]。在相关研究中,Walker 等人 [112] 讨论了如何将信息效力与自上而下的因果作用应用于重大演化跃迁事件 [102]。
5.5. 演化作为集体信息处理的动力学
遗传密码的涌现可以被建模为噪声环境中的信息保存现象 [87]。特别是,有研究认为,对核酸序列进行符号表征的能力,是为应对环境条件变化而涌现并跨越“编码阈值”的 [126]。在模拟通用编码的涌现时,Prokopenko 等人 [87] 提出了“共迹式基因转移”(stigmergic gene transfer)概念,并把相互作用的原始细胞视为一个动力系统。在该系统中,对单个细胞特征进行编码的“原始符号”,通过踪迹激励作用(stigmergy,即通过环境进行的间接协调)共享。
该模型表明,为了在噪声环境中保存有关动力学吸引子的信息,系统可以涌现一种联合编码机制,将共享动力学表示成符号:“……只有当原始系统中的噪声处于某个特定范围,既不能太小,也不能太大时,发展出独特‘符号’编码的压力才会形成”[87]。
Goldenfeld 和 Woese [39] 从非平衡统计力学的立场出发描述演化,将其视为一个关键动力学模态具有集体性质的问题。他们采取“生命即物理学”这一颇具挑战性的立场,认为由物理相互作用产生的集体行为统一原理同样适用于生物学,尤其适用于理解演化与环境涨落之间的相互作用。
在探索集体行为的基本原理时,Goldenfeld 和 Woese [39] 提出了一个关键问题:“物质究竟如何自组织成能够产生反馈环、连接多个组织层次并且可以演化的层级?”[39]。重要的是,该研究将共同演化过程与远离平衡态的动力学联系起来,并指出相应的物理定律仍然未知。尽管如此,他们的综述凸显了共同演化/生态动力学与博弈论相互作用之间的重要联系。这些相互作用可能产生悖论式的集体结果(例如 Nash 均衡),甚至产生混沌动力学(例如动态博弈论模型 [94])。
5.6. 演化中的自我建模动力系统
如第2.6节所述,Watson 等人 [114] 研究了“演化—自我”(evo-ego)关系,描述个体利益与群体利益之间的张力。虽然他们没有使用“缠结的层次”来表述其分析,但该研究仍把个体自利实体的组织方式与其长期集体利益联系起来,并提出两个问题:
“(a)为了形成一个新的个体,各组成部分之间需要怎样的功能关系,以及这些关系应如何组织。(b)这些关系的组织方式如何‘自下而上’地形成,即不预设我们正试图解释的高层个体。”[114]
该研究指出,包含这两个问题的鸡与蛋困境(即怪圈)贯穿个体性的重大跃迁,因为很难回答这样一个问题:复杂适应所必需的高层选择单位,究竟是在其所必需的复杂适应之前出现,还是之后出现。
在尝试解决这一难题时,Watson 等人 [114] 将其与无监督深度学习相类比。他们认为,当个体强化或选择改变单位之间关系的强度时(类似于强化学习期间更新神经网络权重),“系统便成为一个自我建模的动力系统”,其系统动力学因而具有可预测性。换言之,一个自我建模系统能够依据与环境的相互作用,在没有明确外部指导的情况下,发现自身约束和动力学中的某种结构,即构造自身的模型。这类似于无监督学习算法:面对无标签输入数据,通过聚类相似数据点或降低维数来分析并学习其中的模式。
5.7. 集体行动中的信息整合
Watson 等人 [114] 基于与机器学习的类比提出演化联结主义方法,并识别了演化出一种新组织(即新的个体性层次)所需的条件。该组织由“目光短浅、自利的实体”组成,而这些条件与学习不可分解函数所需的条件相同。简而言之,演化单位之间的关系必须以自下而上的方式组织,使它们的相互作用产生协同效应,形成“整体大于部分之和”的结果。关键在于,这种分布式(无监督)学习无需显式的系统层反馈,而可以通过利用局部相互作用中遇到的规律来实现。
换言之,底层实体之间的相互作用产生分布式学习动力学,并通过计算输入状态的不可分解(即非线性不可分离)函数来整合信息。例如,这种函数存在于某些“胚胎型”粒子集合与其相应的“成体”集体表型之间 [114]。反过来,这种整合信息促进集体行动,例如在多个下游变量中产生“特定的协调响应”,从而标志着向下因果作用。就纠缠层级而言,产生个体性演化新阶段的自下而上过程,涉及对赋予集体适合度的不可分解函数进行协同计算,而后以自上而下的方式约束组成单位之间的相互作用。
图7: 一个带有外部解释者的缠结的层级(怪圈)。外部解释者可以是观察者、环境、相互作用粒子等,它可能在不同尺度上运作,并对不同尺度检测到的规律作出响应。
5.8. 演化联结主义与生态脚手架
Watson 等人 [114] 将其“演化联结主义”方法与“生态脚手架”[9](见第2.7节)进行比较。他们强调,在后者中必须假设存在某些“偶然出现的外部条件”,使种群结构产生特定选择压力。换言之,他们认为,生态脚手架通过(暂时)让环境充当“鸡”,解决个体性演化转变中的鸡与蛋问题。不过,Watson 等人 [114] 指出,即便在这些条件下:
“……低层的个体选择仍支持那些能够利用协同适合度相互作用的性状之演化,从而改变粒子之间的关系。一旦粒子之间的协同适合度相互作用已经演化形成,粒子进一步演化出主动支持这种群体化种群结构的性状,随后也将是有利的。”[114]
可以认为,生态脚手架是塑造缠结的层级结构的另一种方式,只是它不包含自我建模。一旦(或如果)脚手架变得多余,已经演化出的“怪圈”就会从系统内部体现集体动力学,其中既包括(i)资源自上而下的分配与散布,也包括(ii)由劳动分工塑造的自下而上的计算 [9]:
“此时,最初的外在生态条件可能改变或消失,但维持高层选择所需的种群结构仍能继续存在,并由粒子的适应性性状加以支撑。”[114]
在后续分析中,我们将论证,发展自我建模能力是生物复杂化中的关键一步,它能够提高生物体适应、复制和自主运作的能力。
专栏5:自指动力学
缠结的层级
缠结的层级是这样一种系统:其不同组织层次或抽象层次彼此交织,无法用简单的层级分类加以描述。它是“不同层次之间的相互作用,其中顶层回过头来影响底层,同时顶层本身又由底层所决定”[46]。换言之,纠缠层级交织着自下而上的涌现与自上而下的(向下)因果作用 [31, 34]。图7说明了缠结层级的概念,图8展示了一个实例:蚂蚁觅食过程中最短路径的形成。
怪圈
正如 Hofstadter [46] 所述:“怪圈是由多个层次构成的层级,其中每个层次都通过某种关系与至少一个其他层次相连。怪圈具有自指性,意味着它以某种方式回绕到自身。尽管看起来有所移动或进展,怪圈最终仍会返回起点,造成悖论或矛盾感。”图8展示了蚂蚁觅食与最优路径形成所构成的怪圈(见第6.2.1节的例子),其中不存在优先的因果方向:蚂蚁是受路径上的信息素梯度驱动(向下因果作用),还是最短路径本身由蚂蚁的运动生成(自下而上的涌现)?
图8: 缠结层级(怪圈)的一个例子:觅食蚂蚁释放的信息素在环境中扩散和蒸发。蚂蚁利用踪迹激励作用(通过环境进行间接协调),朝信息素浓度较高的位置移动。最短路径从这些相互作用中涌现出来(自下而上的涌现),并反过来影响蚂蚁觅食(向下因果作用)。
专栏6:尺度、层次与涌现
尺度与层次
尺度和层次的区别在于:“尺度”意味着沿单一维度的(连续)推进(例如从细粒度到粗粒度),而“层次”通常表示层级结构中离散且彼此有别的阶段。
元层次与解释
可能存在一个外部观察者,对(纠缠)层级各层之间的相互作用进行解释。该外部解释者并不是层级的一部分,但可以与相互作用的两个层次交换物质与信息。例如,环境可以充当外部元层观察者(或元模拟器),通过决定生物体的适合度,对生物体的行为或动力学作出“解释”。层级(hierarchy)具有不同“层次”(level),而观察者可以使用不同的观察“尺度”:高分辨率尺度(例如统计力学)和低分辨率尺度(例如热力学)[85]。观察者通过在某一观察尺度上检测规律并对其作出响应,来区分涌现现象,见图7。
6. 缠结的层级与自我建模
6. 缠结的层级与自我建模
在考察生物、计算和物理动力系统中新颖性生成的跨学科观点后,我们指出复杂化过程的一个共同特征:由低层(例如个体)和高层(例如集体)信息处理要素构成的层级结构不断涌现。这些纠缠的结构表现出程度不一的自指、自我建模与自我复制特性。
为了探讨自我建模在可复制信息处理层级的涌现中发挥的作用,本节提出两类纠缠层级之间的区分:I 型(没有自我建模的怪圈)和II型(具有自我建模的怪圈)。我们将在若干语境中举例说明这两种类型(第6.2节),并论证其动力学复制采用了不同机制(第6.3节)。
6.1. 两类缠结的层级
我们把I型缠结的层级结构(TH-I)定义为:由环境中的微观尺度相互作用所涌现的宏观尺度信息模式,没有被压缩、编码或解码。换言之,没有任何微观尺度对象对涌现的宏观尺度规律进行完整而显式的建模。尽管不同层次之间存在一种“回绕到自身”的递归流 [46],该循环并不涉及压缩,因此 TH-I 中不存在被明确称为“自我”的对象。
相反,在II型缠结的层级结构(TH-II)中,底层运作的微观尺度对象包含某种宏观尺度涌现信息模式经过编码的压缩表征。通过使用被压缩的信息,微观尺度对象能够表征,即建模某些宏观尺度规律。这种建模在自指环中通过编码与解码过程的交替使用而实现。因此,由于层间关系具有纠缠的性质,编码在低层的高层模式压缩表征(即模型)会使整个层级具备自我建模能力(TH-II 的例子见第6.2.2和6.2.4节)。
一般而言,I型与II型之间可能存在一个连续谱:某些缠结的层级只在一定程度上利用压缩或建模,而我们提出的二分法实质上刻画的是两种极限情形。
6.2. 不同类型缠结层级的实例
为了说明两类纠缠层级并形成更直观的理解,下面给出若干主要来自生物学的例子。
6.2.1. 蚂蚁觅食、共迹作用与最优路径形成
蚂蚁在信息素场中觅食并形成最优路径,是一种没有自我建模的缠结的层级结构(TH-I)。在这一情形中,缠结的层级由底层的蚂蚁觅食行为和顶层涌现的最短路径构成(见图8)。每只觅食蚂蚁只根据局部信息释放信息素,而不参照全局(最优)路径。路径本身通过踪迹激励作用 [103] 涌现,即蚂蚁经由环境进行间接相互作用与协调(图8)。重要的是,蚂蚁只感知信息素场中的局部差异(信息素梯度),并且只对局部场进行更新。最优路径是信息素场中的一种规律,但这种规律没有被压缩。支撑踪迹激励作用的信息模式仍然分布在环境中,不涉及任何编码、解码或自我建模。
可以认为,涌现路径的某些特征(例如它成为最短路径的可能性)可归因于蚂蚁的基因组,即以部分和间接的方式编码于其中。换言之,蚂蚁觅食行为属于蚂蚁的直接表型(直接受到其遗传构成影响),而最优路径这一类别则可被视为蚂蚁延伸表型的一部分 [26]。也就是说,由蚂蚁与环境相互作用塑造的物种依赖性信息素路径,会影响基因组的演化。在此过程中,路径的最优性带来演化回报,最终使有益、能够提高适合度的基因型得以传播。被编码的特征,正是在给定环境因素下可能产生最短路径的那些特征。
然而,在某一特定环境中实际涌现的任何物理路径,即依赖环境的信息素场中的某项具体规律,并未直接编码在基因组中。它是由遗传倾向所引导的行为涌现出来的,同时又受到蚂蚁与环境相互作用的影响。
因此,将具体信息素路径与蚂蚁觅食行为联系起来的这个 TH-I,无法利用对延伸表型中某些最优特征进行编码所带来的适应度增益,因为它不包含自我建模。下一个例子,即基因型—表型关系,将说明自我建模发挥关键作用的 TH-II。
6.2.2. 基因型—表现型关系
在环境影响下,基因型与直接表型之间的关系涉及编码遗传信息与生物体自身之间复杂的自指生物动力学,如图9所示。基因型—表现型关系可以被解释为“自我”(表型)与另一对象(基因型)之间的怪圈:基因型“编码”(建模)表现型,同时又被表现型“解码”(见专栏1)。在有性繁殖中,基因型的适应度通过其表现型表现出来。反过来,特定表现型的适应度,即生物体生存和繁殖的概率,会随选择环境而变化 [56]。因此,我们将基因型—表现型之间的关系解释为具有自我建模的缠结的层级结构(TH-II)。
6.2.3. 植物中的叶序模式形成
TH-I 的另一个例子是植物叶片定位过程。叶片通常以规则间隔在植物顶端形成,并经常产生可识别的螺旋模式。然而,这些模式并未由基因组直接编码,而是通过涉及反馈环的细胞—细胞相互作用而形成的。触发叶片向外生长的植物激素生长素 [91]是通过定向的细胞运输分布形成的 [92]。每个细胞评估邻近细胞中的生长素浓度,并按照这些浓度的比例将生长素运输到相应邻居 处[7, 51]。生长素及其自身运输之间的这一反馈意味着,偶然从较高浓度开始的细胞会从周围区域获得更多生长素。然而,在由扩散相对强度决定的某一距离处,会形成另一个生长素峰值。随着细胞分裂创造出新的空间,随后还会形成更多峰值 [51]。由此形成的生长素分布模式没有被显式编码或压缩,因此,除非复制整个系统,否则无法复制这些模式。
图9: 基因型—表现型关系。涉及编码遗传信息之转录与翻译的基因表达,导致具有可观察表型性状的生物体被解码出来(自下而上的构建)。在给定表现型后,选择压力和遗传会跨世代影响基因型,更新编码表型本身的遗传信息(自上而下的因果作用)。基因型—表现型关系在环境影响、表观遗传变化及其他因素的情境中实现。DNA 图片:Wikipedia [120]。
图10: 左:“不可能阶梯”(1958)[81, 124]。右:《画手》(Escher,1948)[121]。
6.2.4. 自我建模集体动力学的演化
“胚胎型”演化单位通过协同相互作用和信息整合产生其“成体”集体表型 [114],这种“演化—自我”关系是 TH-II 的例子。正如 Watson 等人 [114] 所指出,低层(个体)与高层(集体)选择单位之间的关系,是一种自我建模动力系统。其中,整合信息模式对输入状态的不可分解函数进行编码(压缩)(见第5.7节)。因此,我们再次遇到具有自我建模的自指环:“关键问题在于,演化具有自指性,即演化的产物会改变演化过程的参数”[115]。
6.2.5. 没有自我建模的生态脚手架
如第5.8节所述,包含集体利益的缠结的层级可以在没有自我建模的情况下,借助生态脚手架,即有关演化生态位的信息 [9, 114],逐渐成形。在这种情况下,劳动分工并未使用任何关于资源分布与散播的压缩或编码信息,因而不存在自我建模,这是 TH-I 的一个例子。
6.2.6. 视觉悖论
下面转向两个著名的视觉悖论,考察它们是否可以说明不同类型的缠结的层级结构。
第一个悖论是不可能阶梯模式(图10左)。它由 Oscar Reutersvärd 于1937年设计 [106],由 Lionel Penrose 和 Roger Penrose 于1958年重新发现 [81],并在 Escher 的版画《上升与下降》(1960)中得到艺术化呈现。在这一模式中,阶梯以不可能的方式连接,即递归被用于一种不可能的空间构型。尽管外观上是一条连续阶梯,却存在无限的上升与下降循环,使阶梯看起来不断回绕到自身,产生无限重复的视错觉。然而,其中并不存在任何信息模式在自编码对象中的压缩,也没有自我建模,因此它应当属于I型缠结的层级结构。
在《画手》(1948)中,Escher 描绘两只彼此交织、互相将对方画出来的手,创造了一种视觉悖论(图10右)。每只手都在持续绘制另一只手,形成一个绘制“能够绘制自身之对象”的递归环。这幅版画不仅明确呈现了自指和无限递归环的观念,而且可以说刻画了一个对象如何“建模”(构造)另一个对象。
然而,《画手》本身并没有可辨认的模型压缩,因此,把这一例子称为II型缠结的层级结构多少有些牵强。尽管如此,与“不可能阶梯”及《上升与下降》相比,这幅版画中的“自我”概念明显得多,显示了向完全形成的 TH-II 过渡的中间阶段。在完全形成的 TH-II 中,自编码可能通过压缩实现。简言之,《画手》可能说明了一种位于 TH-I 与 TH-II 两个极端之间的缠结的层级结构。
6.3. 缠结的层级中的复制
两种类型之间的差别,也体现在 TH-I 与 TH-II 动力学所能采用的不同复制机制上。
为了复制 TH-I 中涌现的信息模式和规律(例如一条信息素路径),我们必须再现整个环境状态或完整动力学(例如整个信息素场,或从初始状态开始的完整蚂蚁互动历史)。由于不存在压缩和编码,信息处理分布在整个系统中(例如共迹作用),因此必须逐一复制所有细节。
从计算理论上说,要模拟 TH-I 中展开的动力学,需要一种平凡的通用模拟器。该模拟器被定义为描述全部特定解之集合的模拟器。换言之,它“需要访问”所有能够计算可能动力学轨迹的相应图灵机 [40]。在此可以回想 Brooks [14] 的洞见:“世界就是它自身最好的模型——永远完全最新,并在每一个细节上都完整无缺。”
如果不复制整个信息素场(包括完整信息素梯度),就无法复制蚂蚁觅食过程中涌现的最优信息素路径。这一点进一步支持我们把该情形归类为 TH-I。如果系统中的某处以符号方式(即数字方式)编码了最优信息素路径,那么只复制这段编码就可能足够,并可以预期蚂蚁会访问并“读出”所编码的信息,迅速重新发现最优连通路径。
当环境影响使蚂蚁失去信息素路径、转而彼此跟随时,会观察到一种有趣但致命的现象,即“蚂蚁磨坊”。它可能使蚂蚁陷入“死亡螺旋”,直至精疲力竭而死 [95]。正如 Delsuc [28] 所指出:“偶尔形成但足以致命的环形磨坊,似乎是行军蚁为维持这种在生态上极为成功且稳定的集体觅食策略所付出的演化代价。”具体来说,这种病理行为可以用行军蚁集体选择突袭方向的能力来解释 [24]。可以认为,当纠缠层级缺乏显式编码和复制额外信息(例如首选突袭方向)的适当手段时,这种行为就会出现。实际上,在没有可供遵循的显式模式时,蚂蚁只能遵循唯一剩下的规律,即环形路径。
相比之下,TH-II 中涌现的信息模式和规律可以更高效地复制。例如,要以足够高的相似度复制表型,只需复制或克隆基因型,并将其置于相似环境中。DNA 对相关遗传信息的压缩和编码保证了这一点。在计算上,要复制 TH-II 的动力学,需要一种非平凡的“单例”通用模拟器,它通过一台通用图灵机给出一个通用解 [40]。这种方案比描述 TH-I 动力学生成的所有轨迹集合所需的平凡通用模拟器更为高效。
7. 缠结的层级中自我建模的涌现
7. 缠结的层级中自我建模的涌现
原则上,TH-I 中涌现的模式(例如信息素路径、激素分布梯度和生态脚手架)由于具有规律性,都是可压缩的。一旦这种压缩信息可供系统使用,系统就能够开始处理关于自身的信息,并由此成为II型纠缠层级。本节考察这种压缩(即降维)所带来的功能优势:它使自指系统能够更好地预测自身动力学,并更高效地利用其中的规律。
7.1. 功能性自我描述的涌现
在讨论两类纠缠层级之间的区别后,我们现在考察功能性自我描述如何以及为何涌现,并分析相对于 TH-I,它可能为 TH-II 带来哪些功能优势。值得指出的是,在没有自我建模的情况下运作的 TH-I 仍然可以维持良好的稳定性和集体效率,例如蚁群和其他动物群体。因此,我们需要考察自我建模的形成或涌现究竟提供了哪些额外的选择优势。
正如 McMillen 和 Levin [73] 所讨论的,高层组织具有以下独特优势:
-
集体能够利用一种不同的能量景观。
-
信息可以跨尺度传播。
-
集体可以获得新的问题空间和“扩展信息模式”。
简言之,高层组织可以有利地扭曲其子单位所处的能量景观,从而提供一种支持协同问题解决能力的“因果架构”。这些新能力使集体能够“在其子单位并不知晓的空间中导航”[73]。这种因果架构可以被解释为一个信息层级,其中个体动力学与集体动力学相互纠缠。
当“扩展信息模式”在高层问题空间中变得可用后,就可能涌现一种功能性自我描述,用以概括新近可达的规律。这种自我建模使信息层级能够在随机环境影响下压缩、编码并保存有益的信息模式。随后,可以通过解码被压缩的自我描述,恢复被不利条件破坏的功能。
例如,在遗传物质主要通过水平基因转移(HGT)侧向移动的演化时期,没有编码的不精确复制十分常见。Woese [126] 将这种不精确翻译机制的产物称为“统计蛋白质,即其序列只是相应基因之近似翻译的蛋白质”。而多种不精确翻译所得的共有序列,可能非常接近该基因的精确翻译。相比之下,利用编码/压缩信息进行精确复制,是垂直基因转移(VGT,即基因从亲代向子代的垂直传递)的关键特征。我们可以假定,在 HGT 占主导地位的时期,I型纠缠层级只能通过不精确地复制整个生物体,来实现近似复制。
如第2.2节所述,“编码阈值”可能分隔了更早的演化阶段与 RNA 世界,使核酸生命能够用氨基酸序列进行符号表征 [126]。一旦一些原始编码开始涌现,将细胞动力学的原型自我描述概括其中,基于 VGT 的达尔文式垂直继承便成为占主导地位的复制方式。我们的猜想是,这导致了II型缠结的层次结构的形成。
最终,当早期原始编码在 VGT 复制者之间变得可以互换时,基于 DNA 的通用编码涌现出来,基因型—表现型关系也完全形成。换言之,通用编码可能有利于提高复制的稳健性:如果多个副本以一种通用方式得到描述,复制它们就会更高效,这为编码的通用性提供了选择压力。
简而言之,功能性自我描述能够提高复制过程的效率,并保存扩展信息模式。因此,有关显著不可分解规律的压缩信息,即复制者的“模型”,会以某种符号(即数字)形式被编码。由此,使用自我建模的II型缠结的层级结构通过保存信息,改善自身结构和长期功能。
功能性自我描述可以通过若干机制在缠结的信息层级结构中涌现。它可能由劳动分工 [49] 触发:劳动分工促进能力的拆分(即对称性破缺),继而将其中一些能力嵌入或封装进原始编码。另一种可能是,受扰动的生物系统通过在其局部环境中寻找合适的生化元素,并将这些元素捕获为表征其动力学相关特征(例如吸引子)的原始编码,从而保存信息 [87]。正如 Arthur [2] 所指出,系统的复杂性可能通过捕获“软件”而增长:系统捕获较简单的要素,并学会把它们“编程”为“软件”,以实现自身目标。
总之,功能性自我描述和自我建模会在某些选择压力下涌现,并带来明确的演化优势,包括复制的稳健性、劳动分工以及保存不可分解的集体动力学等。其一般模式是:自指和自我建模动力学提高缠结的信息层级结构(TH-II)内部信息处理的效率,但代价是必须对压缩的自我表征进行编码和解码。
7.2. 利用了“指称对象”与“表达式”之间差异的协同适应度相互作用
我们的猜想是,个体利益与群体利益之间的演化张力 [73, 114, 115, 117],是一种有原则且普遍的“不一致”,它与第3.2和5.2节讨论的表达式—指称对象差异直接相关。因此,我们认为,个体性的重大跃迁利用了表达式相空间与指称对象相空间(即问题空间)规模之间的分化。
我们主张,连接个体层与群体层的缠结的层级结构表现出表达式—指称对象的差异,原因在于并非所有集体利益都可以还原为个体偏好的(总和)。这会在个体利益与群体利益之间产生不一致:“个体层选择会反对那些实施群体层选择的适应性结构,包括创造与维持”[117]。从计算理论上说,我们的猜想是:虽然个体利益可以通过给定的一组指称对象来编码,但不可分解的协同群体利益不一定能够通过这些既有指称对象表达出来。
因此,个体利益与群体利益之间的分歧可能导向以下两种情形之一:
(i)当“最大化组成单元而非集体的效用”[115]占据主导时,系统会倾向于维持现有构型的稳健性与稳定性(不会发生跃迁)。
(ii)否则,这种张力将通过一次跃迁得到化解。在该跃迁中,“协调的表现型分化随后受到选择青睐,并由此最大化集体的适应度”[115],而这又会扩展相空间。
8. 作为开放式元模拟的生物时间箭头
8. 作为开放式元模拟的生物时间箭头
在第6节中,我们区分了具有自我建模能力和不具有自我建模能力的缠结的层级结构。随后,在第7节中,我们论证了功能性自我描述能够通过两种方式帮助TH-II系统实现创新:捕获并编码(即压缩)其动力学中的有益规律和模式,并保存由此形成的扩展信息模式。反过来,这会促进更高效的复制过程。
本节在这一前提上进一步提出我们的核心猜想:生物演化不同阶段出现的纠缠层级,通过自指动力学与元模拟,沿着一个连续、开放式的过程发展和扩展。在演化转变期间,该过程会遭遇不可判定性,继而通过扩展计算问题空间(即“跳出系统”)来化解不可判定性。其步骤如下:
(i)不具有自我建模能力的缠结的层次结构涌现。 涌现出的TH-I(见第6节)能够实现分布式协调(例如蚂蚁觅食与踪迹激励作用所形成的信息素路径)和不精确复制(例如“统计蛋白质”),但其稳定性有限。
(ii)压缩的功能性自我描述得到封装。 这一过渡步骤识别某种能够带来演化优势(例如提高复制稳健性)的规律,即信息模式,随后将该模式编码到TH-I的较低层级之中,从而赋予系统一种功能性自我描述。一般而言,这一过程可能由外源与内源因素共同驱动,例如对称性破缺(如劳动分工),以及在外部噪声存在时对信息的保存。
(iii)具有自我建模能力的缠结的层次结构形成。 形成后的TH-II(见第6节)能够使用经过编码和解码的自我描述(例如完整形成的基因型—表现型映射)。这会产生以下结果:
-
自指。 由于系统具备编码和解码能力,所形成的表达式—指称对象关系呈现出二元性:表达式可能成为指称对象,指称对象也可能成为表达式。例如,在程序—数据二元性中,程序可以被编码为数据并作为输入使用(见附录A.1)。
-
不可判定性。 对于给定系统而言,表达式—指称对象二元性必然因二者之间的差异而带来不可判定性:表达式(对象)总是多于指称对象(编码),并且总有一些表达式(可能的对象)是该系统无法访问的。从本质上说,这是一种对角化论证。在基因型—表现型关系中,可能的表现型总是多于特定编码方案下可用的基因型。
(iv)因表达式—指称对象差异而扩展问题空间。 在生物学情境中,这使生物体能够在与环境(给定其当前生态位)相互作用时,访问并利用一个新的问题空间以及“扩展的信息模式”[73]。也就是说,系统能够执行元模拟,并通过更好地适应环境来化解当前的不一致(失配)[101]。
一般而言,步骤(iv)所描述的扩展不一定是突发的(尽管其计算理论类比是图灵跳跃),而可能表现为较低层级的组成单元随时间适应、变化逐渐积累,直至达到临界点。
整个过程涉及自下而上的涌现、自我建模、不可分解的集体适应度(即信息整合)[114]以及“信息的自我创造”(information self-creation)[42]。这些关键特征塑造纠缠信息层级,并使其产生计算新颖性。非正式地说,在一次重大跃迁中,相对于个体组成单元当前可用的符号,集体动力学可能需要不同的“符号”(一种新的“编码”),才能高效描述不可分解的动力学。
总体而言,这一过程沿着具有方向性的螺旋推进:完成步骤(iv)后重新回到步骤(i),形成一个新的、最初不具备自我建模能力的TH-I。张力的化解扩展了问题空间,使扩展后的系统得以进入一个新的、更复杂的景观,其中包含新的(集体)可能性。然而,新景观又会带来新的差异(例如新的生物学矛盾,即新的不可判定性),因而使该过程以开放且不可逆的方式持续下去。这正是生物时间箭头所表示的过程。
我们强调,第3.4节所述的开放式计算元模拟提供的是一种计算理论解释,即某种语义,而不是一种具体采用神谕图灵机和图灵跳跃的机制。在生物系统中,神谕本身并不一定实际存在。相反,更高层级的缠结结构通过捕获扩展相空间中的协同信息模式而涌现。换言之,一旦某一层级的表达式—指称对象差异得到化解,神谕的任务实际上已经完成。总之,开放式元模拟的计算理论解释,为多种具有时间不对称性的现实动力学和具体生物过程提供了统一视角。
9. 讨论与结论
9. 讨论与结论
本研究将开放式生物复杂性现象解释为一种动态计算过程,并提出了一种关于生物时间箭头的计算理论论证。我们的论证遵循哥德尔—图灵—波斯特递归理论框架,该框架形式化了α阶神谕图灵机等可扩展计算系统的构造。我们提出,计算新颖性的开放式生成涉及由高阶系统执行的元模拟,其中高阶系统依次模拟低阶系统所执行的计算。实质上,这种开放式元模拟为低阶“组成单元”所遭遇的不可判定问题提供解答,从而扩展有效的可能性相空间。
在结束全文之前,我们简要回顾若干提出开放式演化和生物复杂化基本原理的研究,并指出它们与我们方法之间的联系。
9.1. 扩展基因组的演化作用
Heng和Heng [42]讨论了(物种特异性的)核型或染色体编码,并指出:
“如果核型编码的改变在系统层面生成了新信息,那么改变后的核型就包含新基因组系统涌现所必需的信息,也就是宏观演化所必需的信息”[42]。
虽然某些核型变化可能促进宏观尺度演化,但仅凭较大的基因组变化或核型变化,不太可能足以促成宏观尺度演化。不过,这些变化可能提供一种前提条件:先在适应度景观中发生一次幅度较大的随机跳跃,随后生物体便能够比以往更容易地在该景观中进行局部探索。
Bingham和Ratcliff [8]同样强调了扩展基因组的演化作用。他们报告了真核生物基因组复制与多细胞性演化之间的关联,并将其与祖先原核生物进行对比。后者往往丢失而非积累DNA,这可能阻碍了原核生物向多细胞性的转变。我们可以把真核生物与原核生物基因组之间的这种差异,解释为二者通过向编码方案中添加更多“字母”而形成更大相空间的能力差异,也就是其自我建模能力的差异。
有趣的是,Bingham和Ratcliff [8]还指出,真核细胞具备充分发展的能力来应对寄生元件,而寄生元件构成了真核生物基因组的相当一部分。这种能力体现了一种化解不一致的要素,而它也可能促进了向多细胞性转变的可能性。
可以把寄生元件(入侵者)与逆反主体作类比。后者即“说谎者”主体(取“说谎者悖论”之意),会利用自我描述中的空隙。例如,计算机病毒会改变宿主代码,使其产生与预定计算相反的结果[68]。又如,新型抗原会扰乱免疫系统中自我与非我的区分,并引发自身免疫性疾病[37]。Markose [71]富有洞见地指出,敲除特定自身免疫调节因子,会使免疫系统丧失对某些自身基因编码的自我表征,进而产生自身免疫病理。这些例子说明,在具有自我建模能力的缠结的信息层级中,实现否定的能力如何促成不一致的产生。
9.2. 动态动力学稳定性(DKS)的提高
为重新表述达尔文演化理论并将其扩展至无生命物质,Pross [88]提出了动态动力学稳定性(dynamic kinetic stability,DKS)原理。以物理化学术语表达的DKS原理,偏向那些能够在复制速率与衰变速率之间维持平衡的稳定动力学模式(例如自催化反应中的模式)。这一方法强调,某些相对简单的自我复制系统(如单分子、由多个亚基构成的寡聚序列(由少数单体聚合而成,二聚、三聚、数聚,区别于 poly‑多聚高聚物)以及最简分子网络)可能采用不完美复制,同时朝具有更高DKS的复制系统演化。关键在于,自催化与协同行为被认为是非生物起源(即生命从无生命物质中涌现)和生物演化的共同特征:
“……协同行为能够在分子层面涌现并表现出来。趋向更复杂复制系统的驱动力,似乎既存在于生物的,也存在于化学的复制子(replicator)中。
……生命的涌现始于某种相对简单的复制性化学系统偶然出现,随后它踏上了通向日益复杂的复制实体的漫长道路”[88]。
这些要素,由不完美复制的组成单元相互作用而涌现的高阶规律(即集体或协同行为)、自指的(自催化)反应,以及复制动力学的稳定性,同样可以用不断扩展自身问题空间的缠结的层级来解释。
9.3. 功能信息的增加
Wong等人[131]研究了功能与选择在演化系统中的作用,并识别出三种利用系统—环境相互作用信息的普适演化机制:静态的持续存在、动态的持续存在和新颖性的生成。信息被解释为系统中的数据模式,这些模式编码关于系统自身、环境或系统与环境关系的内容。功能则被解释为对系统内部状态或外部环境具有因果效力的过程[131]。该研究提出了功能信息增加的一般定律:
“如果系统的许多不同构型因一种或多种功能而受到选择,那么系统的功能信息将增加(即系统将发生演化)”[131]。
在耗散与稳态等能够使自身延续的核心功能之外,这一方法还强调,自我复制系统(包括生命系统)必然是自催化的,并将其与DKS框架作了类比。Wong等人[131]超越DKS方法,将信息处理视为另一种能够自我延续的核心功能。这种以信息为中心的解释,根据不同层级的信息模式如何促进持续存在性,区分了不同类型的动力学持续存在。具体而言,该研究考察了:(i)信息存储,即允许编码关联的记忆。(ii)基于编码记忆来推断未来状态,即基于记忆的预测,它提供因果模型并提高持续存在的能力。(iii)反事实推理,即超越记忆进行预测,通过设想此前不存在的现实版本而产生新颖性[131]。
不断提高的DKS与不断增加的功能信息都体现了时间之箭。我们认为,这两项原理均可被哥德尔—图灵—波斯特框架下的计算理论刻画所涵盖:系统通过扩展自身问题空间,寻找化解特定矛盾与张力的方法,从而执行开放式元模拟。尤其是,生成新颖功能信息所需的“反事实”[131],只能通过考虑否定来形成,而否定通常要置于说谎者悖论的语境中理解。
9.4. 组装理论与“相邻可能”
近期提出的“组装理论”(assembly theory,AT)也试图在新颖性生成的背景下解释并量化选择与演化:
“这一方法使我们能够把新颖性生成和选择纳入复杂对象的物理学。它解释了如何通过考察对象的组装过程,以前向动力学过程来刻画这些对象。通过在组装空间中重新构想物质概念,AT为物理学与生物学提供了一个有力接口。它揭示了在化学尺度上涌现的物理学这一新可能,其中预言了历史与因果偶然性会影响什么”[96]。
在AT中,一个对象通过其在“组装空间”中的可能形成历史来定义,因此,“对象递归地连接基本构件以形成新结构”[32]。从本质上说,在给定当时可用构件的条件下,组装空间就是一个问题空间,其中包含组装某一对象的可能路径。
这一观点可以与Kauffman [52]提出的“相邻可能”(adjacent possible)概念比较:它是指距离系统当前状态仅一步之遥的所有潜在构型的集合。这些可能性受到系统现有组成部分、结构或知识的约束。因此,创新源于系统的既有状态,以及从该状态可立即抵达的相邻可能。
组装理论和“相邻可能”概念都识别出一种差异:一边是利用实际可访问构件能够构造的对象空间,另一边是可以设想的对象空间。从计算理论上看,这种差异可解释为表达式—指称对象差异。它会产生矛盾,并迫使系统通过元模拟和发现新的(组装)路径来扩展问题空间。
9.5. 社会动力学与不可判定性
社会复杂性很可能也会沿着社会—生物时间箭头前进,并以开放式方式增长。不过,社会复杂化超出了本研究的范围。沿着其他类似假说[2, 39, 70, 73, 126],我们在此仅简要指出:具有功能性自我描述和自我建模能力的缠结层级的涌现,可能推动语言与文化演化中的新颖性生成。
具体而言,可以猜想语法为自然语言提供了一种功能性自我描述,对各种语言要素、规则及其解释进行编码。类似地,我们可以把传统、规范、惯例、法律和法律框架等社会制度解释为社会的功能性自我描述。这些社会制度编码并涵盖有组织、已确立的人类行为和关系模式。
编码了日常规范(prevailing regularities)的语法和制度,永远无法穷尽对系统与外部环境相互作用时产生的所有可能情景的描述。语言与社会层面的这种差异,即“表达式”(语言或社会特征)与“指称对象”(已经编码的语法或制度规则)之间的差异,必然导致失配、不一致与矛盾。反过来,化解这些张力要求系统构造被扩展的问题空间,并在其中加入新的惯例(新的“公理”)。
9.6. 总结
我们运用哥德尔—图灵—波斯特框架中的概念和方法,例如表达式—指称对象差异、自指动力学,以及通过图灵跳跃化解不可判定性,来类比个体与集体动力学之间的张力、自我建模过程产生的不可分解集体适应度,以及分隔不同演化跃迁的编码阈值。我们识别出贯穿这些现象的一条共同线索:开放式元模拟。在这一过程中,低阶系统设法将环境(外部)反馈纳入其自我建模动力学之中,从而支持“信息的自我创造”[42]和“信息整合”[105]。
在展开这一类比时,我们区分了两类缠结的层级结构。第一类(TH-I)尽管包含了怪圈(自指),却不具备自我建模能力(见第6节)。在某些对称性破缺条件下(例如劳动分工或环境噪声),封装(嵌入或捕获,见第7.1节)了额外组成部分的系统会变得更有利。这些组成部分通过压缩表征编码了显著的涌现规律和信息模式。得到功能性自我描述增强的缠结的层次结构(TH-II)则具备自我建模能力。
我们从生物学意义上考察了TH-II系统所赋予的自我建模能力。一方面,自我建模使系统能够探索替代性的(适应性)情景,提高能量效率和复制效率,并增强对扰动的韧性。另一方面,自我建模也会在可能指称对象的空间(例如基因型)与可能表达式的空间(例如表型)之间产生差异。可用编码能够表达的对象空间是有限的,而可能对象的空间必然更大(见第7.2节)。这种差异正是对角化论证所利用的核心要素:对角化构造出至少一个这样的“额外”对象,从而证明不可判定性。因此,自指会利用表达式—指称对象二元性(例如程序—数据二元性),以说谎者悖论的形式构造不一致:一个经过编码的表达式(例如程序)被递归地用作其自身的指称对象(例如数据输入)(见第3节和附录A)。
在建立计算不可判定性与生物不可判定性之间的联系之后,我们论证,由生物体—环境相互作用执行的元模拟有望化解这些不一致(即以说谎者悖论形式框定的失配与矛盾)。这种化解通过把已识别的矛盾封装为新公理或适应,从而扩展系统并形成新的相空间,以产生计算和/或生物新颖性(第8节)。类比计算不可判定性,我们指出,开放式元模拟过程需要:(i)在具有自我建模能力的TH-II内部形成的表达式—指称对象二元性;(ii)无限的计算介质;(iii)实现否定的能力。
最后,我们提出,生物时间箭头通过“图灵跳”(不一定是突发的)扩展问题空间并构造更高阶的神谕(元模拟器),由此产生新颖性(第8节)。这一论证在计算的三个经典要素——信息保存(记忆/存储)、信息修改(处理或调节)和信息使用(通信或传输)[42, 54, 60, 65, 84]——之外,加入了“信息的自我创造”。我们提出,从动力系统角度看,正是信息的自我创造构成了沿生物时间箭头发生重大跃迁的一个维度。
附录A 自指与不可判定性
附录A 自指与不可判定性
A.1. 计算模型:图灵机
图灵机在形式上被定义为一个由状态集合构成的系统,其中若干状态被特别指定,包括起始状态以及两个停机状态“接受”和“拒绝”(或者只指定一个停机状态“停机”)。此外还包括输入字母表、纸带字母表,以及一个转移函数。该转移函数把“一个状态与一个纸带符号”组成的二元组,映射为“一个状态、一个纸带符号和一个纸带移动方向(左或右)”组成的三元组[47, 97]。
采用两个停机状态的定义(记为‡)时,停机计算的输出,是对最初写在纸带上的输入作出“接受”或“拒绝”的判定。具体而言,如果机器停在“接受”状态,则初始纸带内容(即输入)被视为已接受。如果机器停在“拒绝”状态,则输入被视为已拒绝。
等价地,也可以只用一个停机状态“停机”来定义图灵机:当机器到达该状态而停机时,停机时写在纸带上的内容表示实际计算输出。这一定义记为†。
这两种定义为表示计算目标提供了灵活性,并凸显了程序与数据的二元性:一部分输入数据始终可以在计算装置内部被用作程序,反之亦然[86]。
A.1.1. 停机问题与对角化
假想的通用判定器、逻辑否定和自指编码之间的相互作用,可以用于证明计算不可判定性。这里我们概述停机问题不可判定性的证明[97]:是否存在一个计算机程序D,能够对任意程序M和输入I,判定M在输入I上是否终止?换言之,如果这样的通用判定器D存在,那么它应当对所有二元组(M,I)都能终止。图灵证明了,对于图灵机,不存在这样的程序D [108]。
使用对角化论证(见第3.1节的表达式—指称对象网格(1)),可以把表达式 取为程序,把指称对象 取为相应程序的编码(例如源代码,作为输入字符串),并令性质 的取值为“接受/拒绝”,分别表示程序 在输入 上会终止/永远运行。
我们先假定停机问题可判定,即总能确定 。随后构造一个“说谎者程序” ,规定它对每个输入 的输出为 ,其中 会反转“接受”和“拒绝”。换言之,输出 通过反转相应的对角元素 来定义。考察对角元素 时,它既不能取“接受”,也不能取“拒绝”,由此产生矛盾并否定停机问题的可判定性。
A.1.2. 自指的说谎者机器
为描述另一种产生等价矛盾的方法,我们沿用Sipser [97]的论证(另见Prokopenko等人[86]对图灵机、形式系统和元胞自动机中这一论证的比较分析)。
步骤1。 我们假设存在一台判定器机器 :对于输入 (其中 是一台图灵机, 是一个输入字符串),如果 接受 ,则判定器 停机并接受其输入。否则,如果 不接受 ,则 停机并拒绝其输入:
步骤2。 我们构造反转器(“说谎者”)机器 ,它:
(i) 将其输入 解释为某台图灵机 的编码;
(ii) 以复合输入 调用判定器机器 ;
(iii) 反转 的输出结果。
换言之,如果 拒绝其复合输入(即根据 的定义,如果 不接受 ),反转器(“说谎者”)机器 就接受输入 ;如果 接受其复合输入(即如果 接受 ), 就拒绝输入 :
当机器 在表示其自身描述的输入 上运行时,程序—数据(即表达式—指称对象)二元性便得到了利用。因此,在这一步中,自指首次以内在方式得到运用。
步骤3。 最后一步是让反转器(“说谎者”)机器 在其自身上运行,即考察自指的反转器(“说谎者”):
这一步再次利用了程序—数据(即表达式—指称对象)二元性和自指,不过这一次是在外部使用。它产生了一个说谎者悖论式的矛盾:只要反转器机器 接受输入 , 就拒绝 。这一矛盾表明判定器图灵机 不可能存在,从而证明了停机问题的不可判定性。
A.2. 形式系统
哥德尔的一项核心技术洞见,是用唯一的自然数对形式系统中的合式公式(well-formed formulas,wff)进行编码。对于每个合式公式 ,这一方案(“哥德尔编号”)都会产生一个自然数 ;随后再用一个数码——公式 的“哥德尔数”的名称——对其编码,记作 。
A.2.1. 哥德尔不完备定理
哥德尔对不完备定理的证明中隐含着一个重要步骤,即自指引理(Self-reference lemma;有时也称不动点引理或对角化引理)[86, 89, 98]:
引理(自指)。 设 是形式系统 中只有一个自由变量的任意公式。那么,存在一个句子(即不含自由变量的公式),使得
这里, 表示 是形式系统 的一个定理;换言之, 可以通过证明在 中推导出来。
根据自指引理,对于描述某个数码之性质的任意公式 ,都存在一个句子 ,在逻辑上等价于句子 。这是自指的,因为表达式 描述了数码 的一个性质,而该数码编码了公式 的哥德尔数。这也构成了一个不动点,因为公式 在逻辑上等价于以 为参数的公式 。
接下来的形式步骤包括定义:
-
公式 ,它强表示如下二元关系:“ 是一个证明的哥德尔数,该证明所证明的公式的哥德尔数为 ”;以及
-
可证性谓词 ,它刻画 在 中可证这一性质,即 。
导向哥德尔第一不完备定理的最后一步,是将自指引理应用于否定的可证性谓词 :
所得表达式从形式上表明,系统 可以推导出: 为真,当且仅当它在 中不可证。
此外,若假设系统 是一致的,则合式公式 在 中既不可证,也不可否证,从而表明系统 是不完备的[86]。
由此得到两条不完备定理:
(i) 第一不完备定理:“任何能够在其中进行一定程度初等算术的一致形式系统 都是不完备的;也就是说,在 的语言中,存在既不能在 中得到证明,也不能在 中得到否证的陈述。”[38]
(ii) 第二不完备定理:“对于任何能够在其中进行一定程度初等算术的一致系统 , 的一致性都不能在 自身之中得到证明。”[38]
A.2.2. 不可判定性
沿用Prokopenko等人[86],我们在此重述若干众所周知的定义。若一个形式系统 的定理集合在 自身中是强可表示的,则称 是可判定的:也就是说, 中存在某个公式 ,使得
对于半可判定性,即定理集合仅为弱可表示的情形,只要求式(A.5)的第一行成立。
尽管如此,仍可以在系统 内部构造一个相对于 的哥德尔句子 :
由此产生一个矛盾——类似于表达式(A.4)所形成的矛盾。因此,至少对于这个句子,强可表示性并不成立,所以 必然是不可判定的。
众所周知的哥德尔句子 ,由某个含有自由变量的公式 构造为 。从本质上说,这利用了形式系统内部的表达式—指称对象二元性。这一选择把关键表达式(A.6)转化为
因此,自指同时被用于表征谓词 的内部和外部[35]。
A.3. 动力系统:元胞自动机
元胞自动机(cellular automaton,CA)是一种定义在无限的多维晶格上的离散动力系统,其中每个晶格位置(元胞)都从有限字母表中取一个值[50, 127]。每个元胞在离散时间步上依据一条涉及相邻元胞取值的确定性局部规则进行更新。某一时刻晶格中各元胞的构型,是由具体元胞取值组成的一个无限序列,并完全由前一个构型决定;初始构型则是时间为零时的晶格元胞序列。
从初始构型出发反复应用更新规则,会产生构型随时间的演化。重要的是,需要把可能构型的空间限制到某些子空间中,例如递归构型;在递归构型中,元胞状态由可计算函数赋值。在这种情况下,这一限制会产生一个“有效动力系统”[100]。
Prokopenko等人[86]通过采用一项约定来确定特定的(期望)输出何时出现,从而把终止条件纳入元胞自动机的定义。这相当于从初始构型开始追踪构型动力学,直到某个(本原递归可判定的)“停机”条件适用,例如形成一个吸引子(不动点或极限环)[61, 100]。从某一初始构型 出发、并配有终止条件 的元胞自动机 ,可以被解释为执行计算 的自动机,而不只是处理信息。
图A1: OTCA元像素是一个 的单元胞,可以模拟任何类“生命游戏”的元胞自动机;图示为开启(ON)状态[123]。
图A2: 图示为关闭(OFF)状态下的OTCA元像素[123]。
A.3.1. 通用元胞自动机
通用元胞自动机(universal cellular automaton,UCA)是一种能够模拟任意元胞自动机动力学的元胞自动机。为了构造通用元胞自动机,必须把任何被模拟的元胞自动机(包括其终止条件和初始构型)编码为数据,使其能够在通用元胞自动机的初始构型中得到表示。模拟元胞自动机时采用的一个重要步骤,是对元胞自动机动力学进行粗粒化:把相邻元胞组合成具有特定尺寸的超元胞[50]。超元胞会呈现固定数量的不同高阶模式,从本质上形成一个新的高阶字母表[119]。
一个令人印象深刻的超元胞实例——外全和型元胞自动机元像素(Outer Totalistic Cellular Automata metapixel,OTCA metapixel)——被设计用于在“生命中的生命”(Life in Life)模拟[119]中模拟经典二维元胞自动机“生命游戏”[36]。图A1和图A2展示了OTCA元像素所模拟的开启和关闭状态,两种状态每隔35 328代交替一次。
粗粒化的超元胞(OTCA元像素)看起来会依照“生命游戏”的规则相互作用(例如,见图A3)。不过,沿用Prokopenko等人[86],我们希望指出:粗粒化元像素状态和粗粒化模式,是底层细粒度元胞自动机所生成的动力学的结果,而不是元像素彼此直接相互作用的结果。换言之,粗粒化动力学完全是模拟出来的。
图A3: 康威生命游戏中一种称为“蟾蜍”(toad)的粗粒化模式(振荡多联骨牌),由元像素元胞模拟[41]。
A.3.2. 不可判定的元胞自动机
重新考察“生命中的生命”模拟[119]可以发现,为细粒度“生命游戏”规定的任何终止条件(例如到达某个特定吸引子或预定义构型),也可以在粗粒度层面上定义,即用元像素状态到达一个相同但经过粗粒化的吸引子或构型来表述。换言之,“生命中的生命”模拟的终止条件是在粗粒化字母表中规定的。
借助基于OTCA元像素的通用元胞自动机,可以重复第A.1.2节所述步骤,并产生一个自指的说谎者元胞自动机。在“生命中的生命”示例中,粗粒化的自指说谎者元胞自动机会接受细粒度“生命游戏”被定义为拒绝的那些吸引子或构型,反之亦然[86]。
换言之,粗粒化元胞自动机动力学中的说谎者悖论通过以下两步形成:(1)反转(翻转)终止条件,从而利用否定;(2)让粗粒化的说谎者在对其自身进行编码的初始构型上运行(即模拟自身),从而利用表达式—指称对象二元性或动力学—数据二元性。
已经构造出若干通用元胞自动机,例如初等元胞自动机规则110 [21]和“生命中的生命”[119]。然而,通用判定器不可能存在。因此,不可判定动力学对应于奇异吸引子和“混沌边缘”[16];它意味着,不可能指定一组终止条件,为从初始构型 出发模拟的任何可设想元胞自动机 指派二元结果[86]。
附录B 不同框架之间的等价关系
附录B 不同框架之间的等价关系
表B1汇总了对图灵机、形式系统和元胞自动机三种框架中导致计算不可判定性的因素所作的比较分析[86]。
表B1: 三种计算框架在状态空间、问题定义和不可判定性证明方面的比较。改编自Prokopenko等人[86]。
ORCID标识符
Mikhail Prokopenko https://orcid.org/0000-0002-4215-0344
Zdenka Kuncic https://orcid.org/0000-0001-6765-3215
Geraint F Lewis https://orcid.org/0000-0003-3081-9319
Ori Livson https://orcid.org/0009-0001-8425-589X
Joseph T Lizier https://orcid.org/0000-0002-9910-8972
参考文献
[1] Adams A, Zenil H, Davies P C W and Walker S I 2017 Formal definitions of unbounded evolution and innovation reveal universal mechanisms for open-ended evolution in dynamical systems Sci. Rep. 7 997
[2] Arthur W B 1993 On the evolution of complexity Working paper 93-11-070 (Santa Fe Institute)
[3] Barbieri M 2008 The mechanisms of evolution: natural selection and natural conventions The Codes of Life: The Rules of Macroevolution (Springer) pp 15–35
[4] Bennett C H 1990 Undecidable dynamics Nature 346 606–7
[5] Bennett C H 1995 Universal computation and physical dynamics Physica D 86 268–73
[6] Berlekamp E R, Conway J H and Guy R K 1982 What is life? Winning Ways for Your Mathematical Plays vol 2 (Academic)
[7] Bhatia N, Bozorg B, Larsson A, Ohno C, Jönsson H and Heisler M G 2016 Auxin acts through MONOPTEROS to regulate plant cell polarity and pattern phyllotaxis Curr. Biol. 26 3202–8
[8] Bingham E P and Ratcliff W C 2024 A nonadaptive explanation for macroevolutionary patterns in the evolution of complex multicellularity Proc. Natl Acad. Sci. 121 e2319840121
[9] Black A J, Bourrat P and Rainey P B 2020 Ecological scaffolding and the evolution of individuality Nat. Ecol. Evol. 4 426–36
[10] Blum H F 2015 Time’s Arrow and Evolution vol 2075 (Princeton University Press)
[11] Boedecker J, Obst O, Lizier J T, Mayer N and Asada M 2012 Information processing in echo state networks at the edge of chaos Theory Biosci. 131 205–13
[12] Bolander T 2017 Self-reference The Stanford Encyclopedia of Philosophy fall edn, ed E N Zalta
[13] Bright M and Bulgheresi S 2010 A complex journey: transmission of microbial symbionts Nat. Rev. Microbiol. 8 218–30
[14] Brooks R A 1990 Elephants don’t play chess Robot. Auton. Syst. 6 3–15
[15] Cantor G 1891 Jahresbericht der Deutschen Mathematiker-Vereinigung (Teubner) (available at: www.digizeitschriften.de/id/37721857X_0001|log1)
[16] Casti J L 1991 Chaos, Gödel and Truth Beyond Belief: Randomness, Prediction and Explanation in Science ed J L Casti and A Karlqvist (CRC Press)
[17] Casti J L 1994 Complexification: Explaining a Paradoxical World Through the Science of Surprise (Harper Collins)
[18] Chaitin G J 1974 Information-theoretic limitations of formal systems J. ACM 21 403–24
[19] Clarke C A, Mani G and Wynne G 1985 Evolution in reverse: clean air and the peppered moth Biol. J. Linn. Soc. 26 189–99
[20] Collin R and Miglietta M P 2008 Reversing opinions on Dollo’s law Trends Ecol. Evol. 23 602–9
[21] Cook M 2004 Universality in elementary cellular automata Complex Syst. 15 1–40
[22] Copeland J 2011 The mathematical objection: Turing, Gödel and Penrose on the mind Studia Logica Conf.: Church’s Thesis: Logic, Mind and Nature
[23] Corominas-Murtra B, Seoane L F and Solé R 2018 Zipf ’s law, unbounded complexity and open-ended evolution J. R. Soc. Interface 15 20180395
[24] Couzin I D and Franks N R 2003 Self-organized lane formation and optimized traffic flow in army ants Proc. R. Soc. B 270 139–46
[25] Davies P C W 1999 The Fifth Miracle: The Search for the Origin and Meaning of Life (Simon and Schuster)
[26] Dawkins R 2016 The Extended Phenotype: The Long Reach of the Gene (Oxford University Press)
[27] Dawkins R 2019 The evolution of evolvability Artificial Life (Routledge) pp 201–20
[28] Delsuc F 2003 Army ants trapped by their evolutionary history PLoS Biol. 1 e37
[29] Eigen M 1971 Selforganization of matter and the evolution of biological macromolecules Naturwissenschaften 58 465–523
[30] Eldredge N et al 1972 Punctuated equilibria: an alternative to phyletic gradualism Models in Paleobiology vol 82 (San Francisco) p 115
[31] Ellis G F R 2012 Top-down causation and emergence: some comments on mechanisms Interface Focus 2 126–40
[32] Ellis G F R 2023 A foundational view of the physics of evolution Nature 622 247–9
[33] Fay P 1992 Oxygen relations of nitrogen fixation in cyanobacteria Microbiol. Rev. 56 340–73
[34] Flack J C 2017 Coarse-graining as a downward causation mechanism Phil. Trans. R. Soc. A 375 20160338
[35] Gaifman H 2007 The easy way to Gödel’s proof and related matters (available at: www.columbia.edu/∼hg17/Inc07-chap0.pdf)
[36] Gardner M 1970 Mathematical games: the fantastic combinations of John Conway’s new solitaire game “life” Sci. Am. 223 120–3
[37] Geenen V 2021 The thymus and the science of self Seminars in Immunopathology (Springer) pp 5–14
[38] Gödel K 1931 Über formal unentscheidbare Sätze der Principia Mathematica und verwandter Systeme. I Mon.hefte Math. Phys. 38 173–98
[39] Goldenfeld N and Woese C 2011 Life is physics: evolution as a collective phenomenon far from equilibrium Annu. Rev. Condens. Matter Phys. 2 375–99
[40] Gonda T, Reinhart T, Stengele S and Coves G D L 2023 A framework for universality in physics, computer science, and beyond (arXiv:2307.06851)
[41] Greene D 2006 Brice Due’s game-of-life metapixel—sample patterns (available at: https://b3s23life.blogspot.com/2006/09/brice-dues-game-of-life-metapixel.html) (Accessed 26 July 2024)
[42] Heng J and Heng H H 2023 Karyotype as code of codes: an inheritance platform to shape the pattern and scale of evolution BioSystems 233 105016
[43] Hernández-Orozco S, Hernández-Quiroz F and Zenil H 2018 Undecidability and irreducibility conditions for open-ended evolution and emergence Artif. Life 24 56–70
[44] Hochstetter J, Zhu R, Loeffler A, Diaz-Alvarez A, Nakayama T and Kuncic Z 2021 Avalanches and edge-of-chaos learning in neuromorphic nanowire networks Nat. Commun. 12 4008
[45] Hoel E P 2018 Agent above, atom below: how agents causally emerge from their underlying microphysics Wandering Towards a Goal: How can Mindless Mathematical Laws Give Rise to Aims and Intention? (Springer) pp 63–76
[46] Hofstadter D R 1980 Gödel, Escher, Bach: An Eternal Golden Braid (Penguin)
[47] Hopcroft J E and Ullman J D 1969 Formal Languages and Their Relation to Automata (Addison-Wesley Longman Publishing Co., Inc.)
[48] Hopfield J J and Tank D W 1985 “Neural” computation of decisions in optimization problems Biol. Cybern. 52 141–52
[49] Ispolatov I, Ackermann M and Doebeli M 2012 Division of labour and the evolution of multicellularity Proc. R. Soc. B 279 1768–76
[50] Israeli N and Goldenfeld N 2006 Coarse-graining of cellular automata, emergence and the predictability of complex systems Phys. Rev. E 73 026203
[51] Jönsson H, Heisler M G, Shapiro B E, Meyerowitz E M and Mjolsness E 2006 An auxin-driven polarized transport model for phyllotaxis Proc. Natl Acad. Sci. 103 1633–8
[52] Kauffman S A 2014 Prolegomenon to patterns in evolution BioSystems 123 3–8
[53] Keeling P J and Palmer J D 2008 Horizontal gene transfer in eukaryotic evolution Nat. Rev. Genet. 9 605–18
[54] Kershenbaum A et al 2016 Acoustic sequences in non-human animals: a tutorial review and prospectus Biol. Rev. 91 13–52
[55] King N 2004 The unicellular ancestry of animal development Dev. Cell 7 313–25
[56] Kinsler G, Geiler-Samerotte K and Petrov D A 2020 Fitness variation across subtle environmental perturbations reveals local modularity and global pleiotropy of adaptation eLife 9 e61271
[57] Koonin E V 2016 Viruses and mobile elements as drivers of evolutionary transitions Phil. Trans. R. Soc. B 371 20150442
[58] Kripke S 2023 Gödel’s theorem and direct self-reference Rev. Symb. Log. 16 650–4
[59] Kun A 2021 The major evolutionary transitions and codes of life BioSystems 210 104548
[60] Langton C G 1990 Computation at the edge of chaos: phase transitions and emergent computation Physica D 42 12–37
[61] Lindgren K and Nordahl M G 1990 Universal computation in simple one-dimensional cellular automata Complex Syst. 4 299–318
[62] Lineweaver C H, Davies P C and Ruse M 2013 Complexity and the Arrow of Time (Cambridge University Press)
[63] Lizier J T, Prokopenko M and Zomaya A Y 2008 Local information transfer as a spatiotemporal filter for complex systems Phys. Rev. E 77 026110
[64] Lizier J T, Prokopenko M and Zomaya A Y 2010 Information modification and particle collisions in distributed computation Chaos 20 037109
[65] Lizier J T, Prokopenko M and Zomaya A Y 2012 Coherent information structure in complex computation Theory Biosci. 131 193–203
[66] Lizier J T, Prokopenko M and Zomaya A Y 2012 Local measures of information storage in complex distributed computation Inf. Sci. 208 39–54
[67] Lloyd S 1988 Black holes, demons and the loss of coherence: how complex systems get information, and what they do with it PhD Thesis Rockefeller University
[68] Marion J-Y 2012 From Turing machines to computer viruses Phil. Trans. R. Soc. A 370 3319–39
[69] Markose S M 2004 Novelty in complex adaptive systems (CAS) dynamics: a computational theory of actor innovation Physica A 344 41–49
[70] Markose S M 2017 Complex type 4 structure changing dynamics of digital agents: Nash equilibria of a game with arms race in innovations J. Dyn. Games 4 255–84
[71] Markose S M 2021 Genomic intelligence as Über bio-cybersecurity: the Gödel sentence in immuno-cognitive systems Entropy 23 405
[72] Mattick J and Amaral P 2023 RNA, The Epicenter of Genetic Information (Taylor & Francis)
[73] McMillen P and Levin M 2024 Collective intelligence: a unifying concept for integrating biology across scales and substrates Commun. Biol. 7 378
[74] Michod R E 2006 The group covariance effect and fitness trade-offs during evolutionary transitions in individuality Proc. Natl Acad. Sci. 103 9113–7
[75] Michod R E 2007 Evolution of individuality during the transition from unicellular to multicellular life Proc. Natl Acad. Sci. 104 8613–8
[76] Mitchell M 2009 Complexity: A Guided Tour (Oxford University Press)
[77] Moore C 1990 Unpredictability and undecidability in dynamical systems Phys. Rev. Lett. 64 2354–7
[78] Okasha S 2006 Evolution and the Levels of Selection (Clarendon)
[79] Pai V P, Lemire J M, Chen Y, Lin G and Levin M 2015 Local and long-range endogenous resting potential gradients antagonistically regulate apoptosis and proliferation in the embryonic cns Int. J. Dev. Biol. 59 327
[80] Pai V P, Lemire J M, Paré J-F, Lin G, Chen Y and Levin M 2015 Endogenous gradients of resting potential instructively pattern embryonic neural tissue via notch signaling and regulation of proliferation J. Neurosci. 35 4366–85
[81] Penrose L S and Penrose R 1958 Impossible objects: a special type of visual illusion Br. J. Psychol. 49 31–33
[82] Penrose R 1994 Shadows of the Mind vol 4 (Oxford University Press)
[83] Post E L 1944 Recursively enumerable sets of positive integers and their decision problems Bull. Am. Math. Soc. 50 284–316
[84] Prohaska S J, Stadler P F and Krakauer D C 2010 Innovation in gene regulation: the case of chromatin computation J. Theor. Biol. 265 27–44
[85] Prokopenko M, Boschetti F and Ryan A J 2009 An information-theoretic primer on complexity, self-organization and emergence Complexity 15 11–28
[86] Prokopenko M, Harré M, Lizier J, Boschetti F, Peppas P and Kauffman S 2019 Self-referential basis of undecidable dynamics: from the Liar paradox and the halting problem to the edge of chaos Phys. Life Rev. 31 134–56
[87] Prokopenko M, Polani D and Chadwick M 2009–10 Stigmergic gene transfer and emergence of universal coding HFSP J. 3 317–27
[88] Pross A 2011 Toward a general theory of evolution: extending Darwinian theory to inanimate matter J. Syst. Chem. 2 1–14
[89] Raatikainen P 2015 Gödel’s incompleteness theorems The Stanford Encyclopedia of Philosophy spring 2015 edn, ed E N Zalta (Metaphysics Research Lab, Stanford University)
[90] Rajpal H, von Stengel C, Mediano P A, Rosas F E, Viegas E, Marquet P A and Jensen H J 2023 Quantifying hierarchical selection (arXiv:2310.20386)
[91] Reinhardt D, Mandel T and Kuhlemeier C 2000 Auxin regulates the initiation and radial position of plant lateral organs Plant Cell 12 507–18
[92] Reinhardt D, Pesce E-R, Stieger P, Mandel T, Baltensperger K, Bennett M, Traas J, Friml J and Kuhlemeier C 2003 Regulation of phyllotaxis by polar auxin transport Nature 426 255–60
[93] Rhodes F H T 1983 Gradualism, punctuated equilibrium and the origin of species Nature 305 269–72
[94] Sato Y, Akiyama E and Farmer J D 2002 Chaos in learning a simple two-person game Proc. Natl Acad. Sci. 99 4748–51
[95] Schneirla T C et al 1944 A unique case of circular milling in ants, considered in relation to trail following and the general problem of orientation American Museum Novitates 1253
[96] Sharma A, Czégel D, Lachmann M, Kempes C P, Walker S I and Cronin L 2023 Assembly theory explains and quantifies selection and evolution Nature 622 321–8
[97] Sipser M 1996 Introduction to the Theory of Computation 1st edn (International Thomson Publishing)
[98] Smullyan R M et al 1984 Fixed points and self-reference Int. J. Math. Math. Sci. 7 283–9
[99] Soare R I 2009 Turing oracle machines, online computing and three displacements in computability theory Ann. Pure Appl. Log. 160 368–99
[100] Sutner K 2012 Cellular automata, classification of Computational Complexity: Theory, Techniques and Applications (Artificial Intelligence) ed R A Meyers (Springer) pp 312–24
[101] Svahn A J and Prokopenko M 2023 An ansatz for computational undecidability in RNA automata Artif. Life 29 261–88
[102] Szathmáry E and Smith J M 1995 The major evolutionary transitions Nature 374 227–32
[103] Theraulaz G and Bonabeau E 1999 A brief history of stigmergy Artif. Life 5 97–116
[104] Tong K, Bozdag G O and Ratcliff W C 2022 Selective drivers of simple multicellularity Curr. Opin. Microbiol. 67 102141
[105] Tononi G 2004 An information integration theory of consciousness BMC Neurosci. 5 1–22
[106] Torre M 2019 Impossible pictures: when art helps math education Proc. Bridges 2019: Mathematics, Art, Music, Architecture, Education, Culture pp 327–34
[107] Turing A M 1937 Computability and λ-definability J. Symb. Log. 2 153–63
[108] Turing A M 1937 On computable numbers, with an application to the Entscheidungsproblem Proc. Lond. Math. Soc. s2-42 230–65
[109] Turing A M 1939 Systems of logic based on ordinals Proc. Lond. Math. Soc. s2-45 161–228
[110] Vetsigian K, Woese C and Goldenfeld N 2006 Collective evolution and the genetic code Proc. Natl Acad. Sci. 103 10696–701
[111] Wagner A 2014 Arrival of the Fittest: Solving Evolution’s Greatest Puzzle (Penguin)
[112] Walker S I, Cisneros L and Davies P C W 2012 Evolutionary transitions and top-down causation (arXiv:1207.4808)
[113] Walker S I and Davies P C W 2013 The algorithmic origins of life J. R. Soc. Interface 10 20120869
[114] Watson R A, Levin M and Buckley C L 2022 Design for an individual: connectionist approaches to the evolutionary transitions in individuality Front. Ecol. Evol. 10 823588
[115] Watson R A et al 2016 Evolutionary connectionism: algorithmic principles underlying the evolution of biological organisation in evo-devo, evo-eco and evolutionary transitions Evol. Biol. 43 553–81
[116] Watson R A, Mills R and Buckley C L 2011 Global adaptation in networks of selfish components: emergent associative memory at the system scale Artif. Life 17 147–66
[117] Watson R A and Szathmáry E 2016 How can evolution learn? Trends Ecol. Evol. 31 147–57
[118] West S A, Fisher R M, Gardner A and Kiers E T 2015 Major evolutionary transitions in individuality Proc. Natl Acad. Sci. 112 10112–9
[119] Wikipedia Contributors 2018 OTCA metapixel (available at: www.conwaylife.com/w/index.php?title = OTCA_metapixel) (Accessed 4 November 2018)
[120] Wikipedia Contributors 2024 DNA—Wikipedia, the free encyclopedia (available at: https://en.wikipedia.org/wiki/DNA) (Accessed 21 June 2024)
[121] Wikipedia Contributors 2024 Drawing hands—Wikipedia, the free encyclopedia (available at: https://en.wikipedia.org/wiki/Drawing_Hands) (Accessed 21 June 2024)
[122] Wikipedia Contributors 2024 Oracle (machine de Turing)—Wikipedia, the free encyclopedia (available at: https://fr.wikipedia.org/wiki/Oracle_(machine_de_Turing)) (Accessed 21 June 2024)
[123] Wikipedia Contributors 2024 OTCA metapixel—Conway’s Game of Life (available at: https://conwaylife.com/w/index.php?title = OTCA_metapixel) (Accessed 26 July 2024)
[124] Wikipedia Contributors 2024 Penrose stairs—Wikipedia, the free encyclopedia (available at: https://en.wikipedia.org/wiki/Penrose_stairs) (Accessed 21 June 2024)
[125] Wikipedia Contributors 2024 Turing machine—Wikipedia, the free encyclopedia (available at: https://en.wikipedia.org/wiki/Turing_machine) (Accessed 14 June 2024)
[126] Woese C R 2004 A new biology for a new century Microbiol. Mol. Biol. Rev. 68 173–86
[127] Wolfram S 1984 Computation theory of cellular automata Commun. Math. Phys. 96 15–57
[128] Wolfram S 1984 Universality and complexity in cellular automata Physica D 10 1–35
[129] Wolfram S 2024 Why does biological evolution work? A minimal model for biological evolution and other adaptive processes (available at: http://writings.stephenwolfram.com/2024/05/why-does-biological-evolution-work-a-minimal-model-for-biological-evolution-and-other-adaptive-processes)
[130] Wolpert D H 2000 On the computational capabilities of physical systems part II: relationship with conventional computer science (arXiv:physics/0005059)
[131] Wong M L, Cleland C E, Arend D Jr, Bartlett S, Cleaves H J, Demarest H, Prabhu A, Lunine J I and Hazen R M 2023 On the roles of function and selection in evolving systems Proc. Natl Acad. Sci. 120 e2310223120
[132] Yoon H-S and Golden J W 2001 PatS and products of nitrogen fixation control heterocyst pattern J. Bacteriol. 183 2605–13
参考文献可上下滑动查看
自指与AI读书会
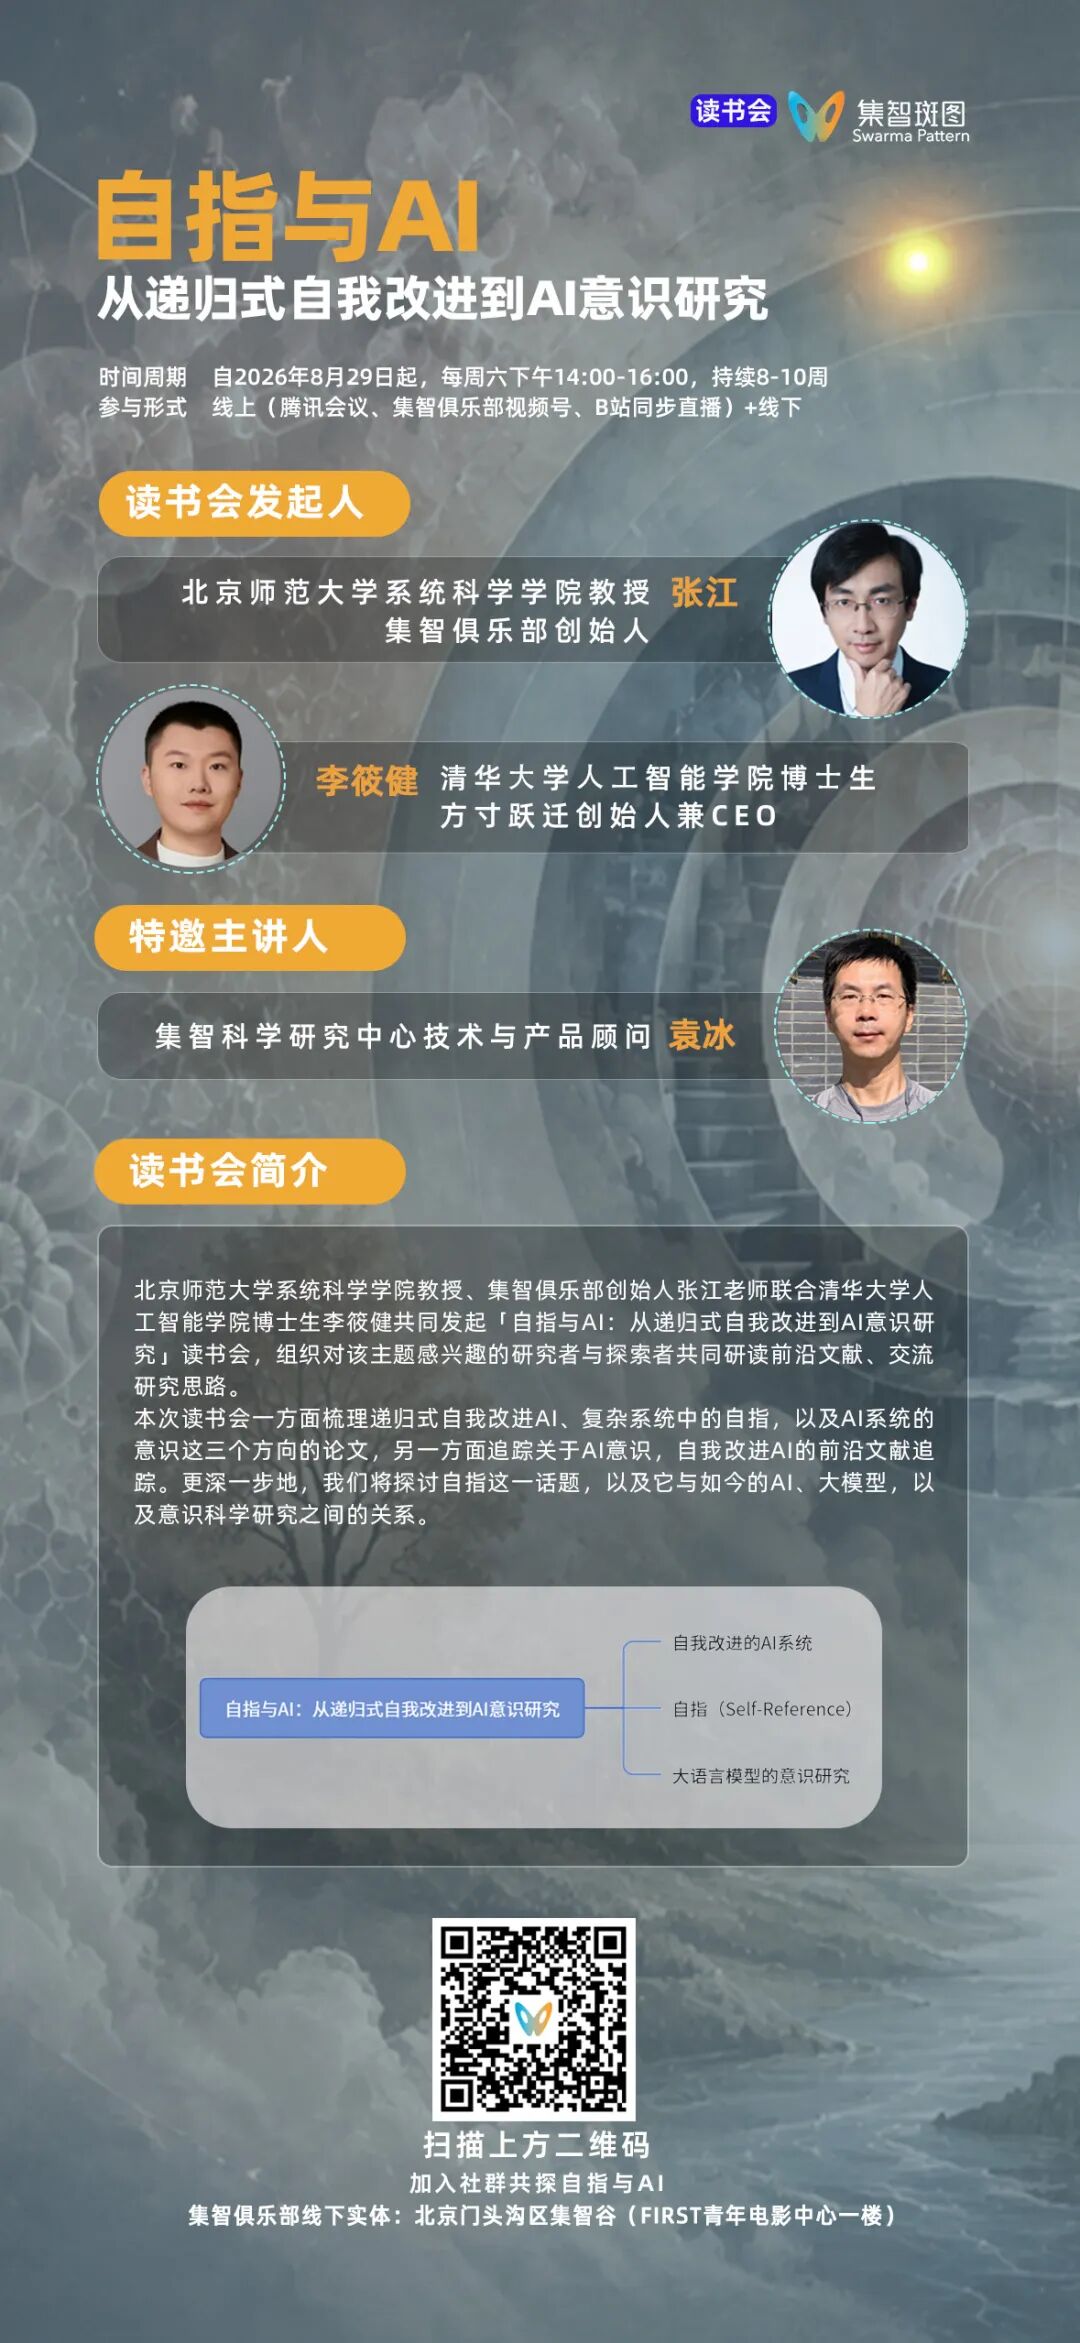
为系统梳理自指与AI领域的最新进展,北京师范大学系统科学学院教授、集智俱乐部创始人张江老师联合清华大学人工智能学院博士生李筱健共同发起「自指与AI:从大模型自我改进到意识研究」读书会,组织对该主题感兴趣的研究者与探索者共同研读前沿文献、交流研究思路。读书会将于2026年8月29日起每周六下午14:00-16:00线上开展,持续约10周,包含主讲分享与讨论交流,并提供会后视频回放,诚邀相关领域研究者及跨学科兴趣者参与。
自指与AI读书会
为系统梳理自指与AI领域的最新进展,北京师范大学系统科学学院教授、集智俱乐部创始人张江老师联合清华大学人工智能学院博士生李筱健共同发起「自指与AI:从大模型自我改进到意识研究」读书会,组织对该主题感兴趣的研究者与探索者共同研读前沿文献、交流研究思路。读书会将于2026年8月29日起每周六下午14:00-16:00线上开展,持续约10周,包含主讲分享与讨论交流,并提供会后视频回放,诚邀相关领域研究者及跨学科兴趣者参与。